Свободные радикалы в репродуктивных процессах
Резюме
Активные формы кислорода и азота (АФК/АФА) играют существенную роль в биологических процессах. Значительные количества АФК и АФА вызывают снижение активности эндогенных антиоксидантных систем. Цепи переноса электронов в митохондриях, вирусные и бактериальные инфекции, промышленные поллютанты и различные клеточные пути представляют собой основные источники продукции АФК. Умеренные концентрации АФК и АФА благотворно сказываются на таких репродуктивных процессах, как созревание сперматозоидов, капацитация, акросомальная реакция и оплодотворение. Чрезмерное производство АФК нарушает функцию сперматозоидов и приводит к повреждению ДНК, слиянию сперматозоидов и бесплодию. АФК могут вызвать бесплодие по двум механизмам: повреждение мембран сперматозоидов с последующим снижением их подвижности и повреждение ДНК сперматозоидов. Усиление радикалообразования в условиях развития оксидативного стресса провоцирует образование многочисленных «пробоин» в богатых содержанием полиненасыщенных жирных кислот мембранах сперматозоидов. Поступление ионов Na+ и Ca2+ через образуемые «пробоины» вызывает изменение осмоляльности, образование растворимых фосфатов кальция и активацию посредством Ca2+ протеолитических и фосфогликолитических ферментов. Регуляция баланса систем про- и антиоксидантов позволит обеспечить нормальное протекание репродуктивных процессов. Основным путем такой регуляции является снижение (или устранение) рисков неблагоприятных эндогенных и экзогенных воздействий на фоне дозированного потребления жиро- и водорастворимых антиоксидантов.
Ключевые слова
- активные формы кислорода (АФК)
- активные формы азота (АФА)
- оксидативный стресс
- антиоксиданты
- бесплодие
- сперматозоиды
- липопероксидация
Дата поступления: 21.05.2024
Дата принятия в печать: 06.11.2024
Дата публикации: 10.11.2025
Свободные радикалы обладают высокой реакционной способностью, поскольку содержат неспаренный электрон. В результате происходят окисление и повреждение важнейших клеточных структур и связанных с ними биомолекул белков, фосфолипидов, а также ДНК клеток. Наиболее восприимчивыми к биологическому окислению (липопероксидации) оказываются ненасыщенные (а также полиненасыщенные) карбоновые кислоты, входящие в состав ненасыщенных фосфолипидов. Радикалообразование является следствием пероксидного окисления, имеющего место в условиях восстановительной модификации кислородного атома. Восстановление кислорода с образованием воды в дыхательной цепочке происходит, в частности, в тканях организма либо при ферментативном синтезе простагландинов [1].
Все индукторы свободнорадикального окисления можно разделить на следующие группы: 1) активные формы кислорода (АФК), представляющие собой высокореактивные молекулы, среди которых следует указать молекулярный кислород (O2), перекись водорода (H2O2), гидропероксил (HO2) и гидроксильный радикал (OH); 2) переходные металлы, которые имеют неспаренные электроны; 3) активные формы азота (АФА), которые способны вызывать окислительное повреждение и гибель клеток, например оксид азота (NO), пероксинитрит-анион (ONOO−) и диоксид азота (NO2) [2, 3]. В настоящее время широко признано, что АФК/АФА играют значительную роль во многих биологических процессах — от роста бактерий до функции мозга млекопитающих. Клетки млекопитающих активно производят АФК и АФА, которые в свою очередь регулируют широкий спектр физиологических процессов, включая метаболизм, транскрипцию и трансляцию генов, подвижность половых клеток, их деление и дифференцировку [4]. Значительные количества АФК и АФА вызывают снижение активности эндогенных антиоксидантных систем.
Сперма состоит из различных типов клеток, таких как зрелые и незрелые сперматозоиды, круглые клетки различных стадий сперматогенеза, лейкоцитов и эпителиальных клеток. Из них лейкоциты (нейтрофилы и макрофаги) и незрелые сперматозоиды являются двумя главными источниками АФК. Полиморфноядерные лейкоциты (50—60% всех лейкоцитов) и макрофаги (20—30% всех лейкоцитов) происходят из простаты и семенных пузырьков. Как один из основных инструментов борьбы с болезнетворными микроорганизмами лейкоциты производят высокие уровни АФК: когда лейкоциты сталкиваются с микроорганизмом, в них через систему никотинадениндинуклеотидфосфата (НАДФН) начинается продукция АФК. Кроме того, увеличение провоспалительных белков-регуляторов и снижение активности ферментативного звена антиоксидантной системы приводят к увеличенным уровням АФК. Наряду с эндогенными источниками АФК есть многочисленные внешние источники, которые производят АФК в патологическом количестве. К этим источникам относят индустриальные поллютанты, курение, алкоголь, повреждение спинного мозга и варикозное расширение вен семенного канатика [2].
Считается, что баланс между оксидантами и антиоксидантами имеет первостепенное значение для клеточной функции, приспособленности и жизнеспособности и нарушение этого баланса связано с некоторыми распространенными заболеваниями человека, включая диабет, атеросклероз, рак и нейродегенеративные заболевания [5, 6]. Одной из причин нарушения такого баланса является развитие оксидативного стресса (ОС) в условиях неблагоприятных факторов внешней среды.
Перекисное окисление липидов — чрезвычайно сложный процесс. В результате свободнорадикального окисления образуются гидроперекиси, гидроксипроизводные, карбонильные соединения и модифицированные белки. Считается, что полиненасыщенные жирные кислоты (ПНЖК) — основной субстрат липопероксидации. Очень высокое количество ПНЖК содержится в плазматической мембране сперматозоидов. Считается, что они играют важную роль в регуляции мембранной текучести в сперме и регуляции сперматогенеза. В связи с этим ненасыщенные фосфолипиды, входящие в состав биологических мембран, являются главным субстратом пероксидного (перекисного) окисления липидов. В результате такого окислительного процесса клеточная мембрана (как, впрочем, и все остальные мембранные элементы клетки) истончается за счет возникновения в ней так называемых пробоин, приобретает аномальную текучесть и, как следствие, разрывается, что в конечном счете ведет к гибели клетки. Структурно ненасыщенную часть фосфолипида можно изобразить как RCH2―CH=CH―R′, где центральной основой является ненасыщенная часть ―CH=CH―. Тогда схематично механизм липопероксидации ненасыщенных фосфолипидов выглядит следующим образом (см. рисунок).
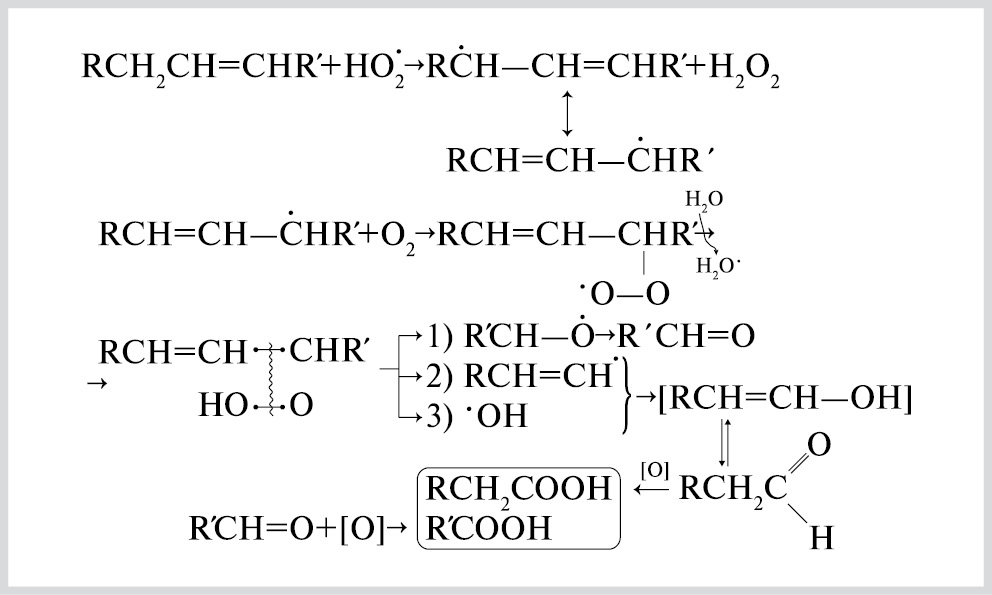
Схема механизма липопероксидации ненасыщенных фосфолипидов.
Как видно из схемы (см. рисунок), результатом процесса липопероксидации ненасыщенных фосфолипидов в биологических мембранах клетки и мембранных органоидах является совокупность органических кислот с укороченной углеродной цепью. Вместе с тем в составе фосфолипидов имеются ПНЖК, в состав которых обычно входят арахидоновая, линоленовая и другие кислоты. В таком случае основным конечным продуктом пероксидного окисления является малоновый диальдегид (МДА), способный реагировать с белками, находящимися в клеточной цитоплазме, вызывая их сшивание и потерю их нативных свойств. В связи с этим МДА является главным маркером уровня свободнорадикальных процессов в клетке и тканях [7].
ОС, таким образом, возникает в результате дисбаланса между продукцией АФК и системой антиоксидантной защиты в клетке; это оказывает пагубное воздействие на жизнь последней [8]. Клеточные структуры, биологические мембраны, биомолекулы содержимого клеток (белки, липиды, нуклеиновые кислоты) подвержены воздействию ОС, что в конечном счете является причиной многочисленных патологий, в том числе онкологических заболеваний, болезней сердечно-сосудистой системы и бесплодия [9—11]. АФК образуются в результате кислородного метаболизма. Ферментативными источниками АФК являются: моноаминоксидаза, НАД(Ф)Н-оксидаза, ксантиноксидаза, циклооксигеназа, липоксигеназа, миелопероксидаза и синтаза оксида азота [12]. Промышленные поллютанты, инфекционные заболевания вирусной и бактериальной природы, а также различные сигнальные пути, окислительные цепи фосфорилирования представляют собой дополнительные источники генерирования АФК и АФА [13‒15]. Вместе с тем физиологические уровни АФК оказывают положительное влияние на ряд клеточных путей, в том числе на протеинкиназный путь, экспрессию генов, пролиферативные пути, а также на репродуктивные процессы (овуляцию, фолликулогенез, созревание и капацитацию сперматозоидов и оплодотворение). Монооксид азота, будучи АФА, также оказывает положительное влияние на сперматогенез и фолликулогенез, эффекты вазодилатации мелких сосудов, в т.ч. в области малого таза, что в конечном счете вносит значительный вклад в стимулирование репродуктивных процессов. У мужчин и женщин с бесплодием отмечается повышенная продукция АФК. У мужчин с варикоцеле имеет место гиперпродукция монооксида азота. Известно, что основными формами АФК, оказывающими влияние на жизнеспособность и функциональную активность сперматозоидов, являются H2O2 и «агрессивный» гидроксильный радикал •OH [16, 17], а также пероксидные радикалы гипохлорит-ионы [18, 19]. Основными биомаркерами пероксидного окисления липидов, индуцированного АФК, являются МДА и 4-гидроксипентеналь, а также ряд кетосоединений; при окислении углеводов в основном образуются различные кетоальдегиды и кетоамины [20, 21]. Основными продуктами пероксидного окисления белков при участии АФК являются так называемые модифицированные белки, для которых становятся характерными изменение их электрических зарядов, разрывы их полипептидной цепочки, а также появление кетогрупп в структурах модифицированных белков. Таким образом, можно заключить, что в результате перекисного (пероксидного) окисления белков, углеводов и липидов образуются разнообразные кетосоединения, которые можно считать основными маркерами липопероксидации. Повышенный уровень этих соединений легко идентифицировать с помощью инфракрасной спектроскопии. ДНК-молекулы разрушаются специфично в условиях перекисного окисления, индуцированного АФК: цепи ДНК получают множественные разрывы (в зависимости от базового уровня АФК), азотистые основания также подвергаются окислению, а белки перекрестно связываются с образующимися фрагментами полинуклеотидной цепи [22].
Известно, что ОС вызывает бесплодие посредством индукции изменений длины теломер [23—25], ядерных аномалий, фрагментации ДНК, апоптоза [26], мутаций [10], изменений в структуре рибонуклеиновой кислоты и ДНК [27—29].
Вместе с тем накопились вполне достоверные сведения об ОС и репродуктивной системе. В нормальных условиях низкий уровень АФК необходим для фертильности [30]. И сперматозоиды, и ооциты производят АФК, которые необходимы для взаимодействия сперматозоидов и яйцеклеток. Производство АФК сбалансировано антиоксидантами. Чрезмерное производство АФК нарушает функцию сперматозоидов и приводит к повреждению ДНК, слиянию сперматозоидов и бесплодию [31]. Пониженное содержание H2O2 способствует повышению функциональной активности сперматозоидов, например их гиперактивации и взаимодействию с ооцитом [32]. В то же время низкие уровни АФК вносят вклад в усиление гидролиза фосфатидов, что в конечном счете ведет к повышению жидкостности (текучести) мембран сперматозоидов. Последнее обстоятельство положительно сказывается на процессах слияния сперматозоидов с яйцеклеткой. Было выявлено, что монооксид азота выполняет исключительную роль в процессах фолликулогенеза. Пониженные концентрации монооксида азота способствуют созреванию ооцитов и участвуют в процессах оплодотворения. Одновременно с этим было показано, что повышенное содержание в крови NO коррелирует с низкой долей вероятности наступления и развития беременности [17, 33].
Причиной нарушения функционального состояния сперматозоидов считается ОС. Было показано, что АФК вызывают развитие инфертильности (бесплодия) через посредство двух механизмов: 1) за счет повреждения мембран сперматозоидов и, как следствие, угнетения их двигательных характеристик; 2) за счет повреждения структуры ДНК сперматозоидов [34]. ОС наносит значительный ущерб структурно-функциональным характеристикам сперматозоидов ввиду высокого содержания в их цитоплазматической мембране полиненасыщенных карбоновых кислот. Таким образом, процессы радикалообразования и липопероксидации обусловливают снижение подвижности сперматозоидов вплоть до полной ее потери [35]. Вместе с тем снижение ферментативной активности антиперекисных ферментов, таких как каталаза и глутатионпероксидаза, вносит существенный вклад в усиление процессов свободнорадикального окисления [36]. Выявлен целый ряд механизмов участия ОС в угнетении функциональной активности сперматозоидов. К таковым относятся: пероксидное (перекисное) окисление липидов; образование на промежуточных стадиях пероксидного окисления липидов гидропероксидных радикалов и гидроперекисей; взаимодействие с элементами переходных металлов, например с железом или медью; генерирование цитотоксических пероксильных радикалов, которые нарушают функции сперматозоидов и вызывают их слияние [17]. Генные мутации, вызываемые повышенным уровнем АФК, приводят к снижению качества спермы [22]. Чрезмерное производство АФК в митохондриях приводит к высвобождению факторов, индуцирующих апоптоз и фрагментации ДНК [37]. Курение также снижает общее количество сперматозоидов, их плотность и количество подвижных сперматозоидов [16, 38].
Следует сказать несколько слов о токсичности некоторых природных поллютантов. Многие исследования показали, что мышьяк является мощным токсикантом для репродуктивной системы. Мышьяк вызывает токсические эффекты в отношении мужской репродуктивной функции вследствие его непосредственного взаимодействия с SH-группами белков, присутствующих в хроматине половых клеток и жгутиках [39]. Отметим, что даже в незначительных концентрациях мышьяк способен вызвать блокировку клеточного деления с последующим апоптозом за счет нарушения экспрессии генов в пределах всего генома. Это в конечном счете вызывает разбалансировку репаративных процессов ДНК сперматозоидов и разрушение самого генома [29]. Кроме того, мышьяк вызывает угнетение секреторной активности гормонов репродукции в системе «гипофиз — семенники» (снижение уровней фолликулостимулирующего гормона, лютеинизирующего гормона и тестостерона). Очевидно, здесь сказываются токсические эффекты мышьяка, связанные с его участием в модулировании экспрессии генов, ответственных за процессы биосинтеза указанных репродуктивных гормонов. Доказано снижение общего количества сперматозоидов в присутствии даже небольших концентраций мышьяка, что коррелирует с пониженным содержанием глутатионпероксидазы и повышенным количеством образуемого в ходе липопероксидации МДА. Вполне ожидаемо, что в присутствии мышьяка возрастает уровень АФК в тестикулярной ткани; кроме того, имеет место угнетение сперматогенеза за счет трансформационных изменений андрогенных рецепторов. Также установлено, что именно остатки цистеина в ДНК-связывающем участке стероидных рецепторов подвергаются структурной модификации, что влечет за собой ингибирование активности этих рецепторов. Воздействие мышьяка также ведет к снижению массы яичек. Таким образом, можно заключить, что токсические эффекты мышьяка проявляются с нарушением структурно-функциональных характеристик сперматозоидов, вызванных повреждением ДНК на фоне усиления радикалообразования в тестикулярной ткани. Эндокринные сдвиги системе «гипофиз – семенники» оказывают негативное действие на тестикулярный сперматогенез, поскольку доказано паракринное действие тестостерона на сперматогенез, особенно на этапе созревания сперматозиодов [40—43]. Проводя параллель с токсическими эффектами сероводородсодержащего природного газа, оказываемыми им на репродуктивные процессы у самцов крыс, можно также допустить генерализованное угнетение репродуктивной функции мужского типа в условиях агрессивных токсикантов в пределах всей гипоталамо-гипофизарно-гонадной оси. Основными причинами токсических эффектов сероводородсодержащих поллютантов являются процессы радикалообразования, с одной стороны, и процессы угнетения тканевого дыхания, связанного с нарушением окислительного фосфорилирования, с другой. Кроме того, угнетается функциональная активность антиперекисных ферментов [24].
Характерной особенностью большинства, если не всех, биологических мембран является асимметричное расположение липидов в бислое. Липидный состав плазматической мембраны сперматозоидов млекопитающих заметно отличается от таковых у соматических клеток млекопитающих. Они имеют очень высокий уровень фосфолипидов, стеролов, насыщенных жирных кислот и ПНЖК, поэтому сперматозоиды особенно чувствительны к повреждению, вызванному чрезмерным высвобождением АФК. Липиды являются основными веществами, ответственными за текучесть мембранных липидных бислоев. Они также участвуют в качестве промежуточных соединений при слиянии клеток. Сперматозоиды подвергаются изменениям в содержании липидов во время прохождения через эпидидимис. Значительно возрастает содержание плазмалогенов. Очень высокое количество ПНЖК содержится в плазматической мембране человеческой спермы [40]. Оболочка сперматозоидов асимметрична по строению и функциям. Она образована в результате межмолекулярных взаимодействий фосфолипидов, плазмалогенов и сфингомиелинов, находящихся в динамическом равновесии с мембранными белками, что делает ее легкой мишенью для окислителей. Плазматическая мембрана сперматозоидов содержит большое количество ПНЖК, необходимых для акросомной реакции и взаимодействия с мембраной ооцита. С другой стороны, высокое содержание ПНЖК в плазматических мембранах сперматозоидов делает их очень чувствительными к атаке свободных радикалов [41]. В то же время низкие концентрации антиоксидантных ферментов (каталазы, дисмутазы, пероксидазы и глутатионредуктазы) в плазматической мембране также превращают сперматозоиды в клетки, чувствительные к атаке свободных радикалов (особенно атаке гидроксильного радикала OH и гидропероксила HO2), а также влияют на всю постакросомальную область, вызывая изменение ее проницаемости. Усиленное радикалообразование в условиях ОС провоцирует появление многочисленных «пробоин» в мембранах сперматозоидов, через которые начинают поступать ионы Na+ и Ca2+. Это вызывает изменение осмолярности, образование небольшого количества растворимых фосфатов кальция, истощение аденозинтрифосфата и активацию посредством Ca2+ протеолитических и фосфогликолитических ферментов. В конечном счете все это приводит к потере или снижению подвижности сперматозоидов, аномалиям их морфологии, проблемам с фертильностью и гибели клеток [42, 43].
Заключение
Таким образом, активные формы кислорода и азота (АФК/АФА) в небольших концентрациях оказывают благотворное воздействие на репродуктивные процессы, такие как созревание сперматозоидов, капацитацию и акросомальную реакцию, так как и сперматозоиды, и ооциты производят в умеренных количествах АФК и АФА. Это связано с тем, что для оплодотворения яйцеклетки решающее значение имеет так называемая текучесть мембраны сперматозоида, АФК же способствуют некоторому «разжижению» их мембраны, поскольку последняя богата полиненасыщенными жирными кислотами. Вместе с тем полиненасыщенные жирные кислоты — важнейший субстрат липопероксидации, и в условиях усиленной продукции АФК/АФА создаются все необходимые условия не только для разжижения мембраны сперматозоида, но и, прежде всего, для создания многочисленных разрывов и пробоин этих мембран, что в конечном счете приводит к гибели сперматозоидов и нарушению структуры их ДНК. С другой стороны, истощение ресурсов антиоксидантной защиты в условиях развития оксидативного стресса ведет к разрушительным последствиям усиленного радикалообразования. В связи с этим баланс систем про- и антиоксидантов может обеспечить нормальное функционирование репродуктивной системы мужского и женского типов, а также протекание репродуктивных процессов на этапе оплодотворения. Основным путем такой регуляции является снижение (или устранение) рисков неблагоприятных эндогенных и экзогенных воздействий на фоне дозированного потребления жиро- и водорастворимых антиоксидантов.
Участие авторов:
Концепция и дизайн исследования ‒ Логинов П.В.
Сбор и обработка материала ‒ Логинов П.В., Памешова А.К.
Написание текста ‒ Памешова А.К.
Редактирование ‒ Логинов П.В., Памешова А.К.
Источник финансирования. Личные средства.
Благодарности. Авторы выражают благодарность сотрудникам кафедры фундаментальной химии ФГБОУ ВО «Астраханский государственный медицинский университет» Минздрава России за ценные консультации при написании настоящего обзора.
Авторы заявляют об отсутствии конфликта интересов.
- Halliwell B. Free radicals, antioxidants, and human disease: curiosity, cause or consequence. Lancet. 1994;344(8924):721-724. https://doi.org/10.1016/s0140-6736(94)92211-x
- Николаев А.А., Логинов П.В., Ветошкин Р.В. Роль свободных радикалов в функции сперматозоидов. Астраханский медицинский журнал. 2014;9(1):23-29.
- García TBE, Saldaña BA, Saldaña GL. El estrés oxidativo y los antioxidantes en la prevención del cancer [Oxidative Stress and Antioxidants in Cancer Prevention]. Revista Habanera de Ciencias Médicas. 2012;12(2):187-196. (In Spanish).
- Benhar M. Oxidants, Antioxidants and Thiol Redox Switches in the Control of Regulated Cell Death Pathways. Antioxidants. 2020; 9(4):309. https://doi.org/10.3390/antiox9040309
- Cortese-Krott MM, Koning A, Kuhnle GGC, Nagy P, Bianco CL, Pasch A, Wink DA, Fukuto JM, Jackson AA, van Goor H, Olson KR, Feelisch M. The Reactive Species Interactome: Evolutionary Emergence, Biological Significance, and Opportunities for Redox Metabolomics and Personalized Medicine. Antioxidants & Redox Signaling. 2017;27(10):684-712. https://doi.org/10.1089/ars.2017.7083
- Sies H, Berndt C, Jones DP. Oxidative Stress. Annual Review of Biochemistry. 2017;86:715-748. https://doi.org/10.1146/annurev-biochem-061516-045037
- Владимиров Ю.А., Азизова О.А., Деев А.И., Козлов А.В., Осипов А.Н., Рощупкин Д.И. Свободные радикалы в живых системах. В кн.: Итоги науки и техники. Сер. Биофизика. М.: ВИНИТИ; 1991.
- Khosravi M, Poursaleh A, Ghasempour G, Farhad S, Najafi M. The effects of oxidative stress on the development of atherosclerosis. Biological Chemistry. 2019;400(6):711-732. https://doi.org/10.1515/hsz-2018-0397
- Aitken RJ. Impact of oxidative stress on male and female germ cells: Implications for fertility. Reproduction. 2020;159(4):R189-R201. https://doi.org/10.1530/REP-19-0452
- Aitken RJ, Baker MA. The Role of Genetics and Oxidative Stress in the Etiology of Male Infertility − A Unifying Hypothesis? Frontiers in Endocrinology. 2020;11:581838. https://doi.org/10.3389/fendo.2020.581838
- Hayes JD, Dinkova-Kostova AT, Tew KD. Oxidative Stress in Cancer. Cancer Cell. 2020;38(2):167-197. https://doi.org/10.1016/j.ccell.2020.06.001
- Yaribeygi H, Sathyapalan T, Atkin SL, Sahebkar A. Molecular Mechanisms Linking Oxidative Stress and Diabetes Mellitus. Oxidative Medicine and Cellular Longevity. 2020;2020:8609213. https://doi.org/10.1155/2020/8609213
- Klaunig JE. Oxidative stress and cancer. Current Pharmaseutical Design. 2018;24(40):4771-4778. https://doi.org/10.2174/1381612825666190215121712
- Hoque SM, Umehara T, Kawai T, Shimada M. Adverse effect of superoxide-induced mitochondrial damage in granulosa cells on follicular development in mouse ovaries. Free Radical Bioljgy and Medicine. 2021;163:344-355. https://doi.org/10.1016/j.freeradbiomed.2020.12.434
- Rendra E, Riabov V, Mossel DM, Sevastyanova T, Harmsen MC, Kzhyshkowska J. Reactive oxygen species (ROS) in macrophage activation and function in diabetes. Immunobiology. 2019;224(2):242-253. https://doi.org/10.1016/j.imbio.2018.11.010
- Lorian K, Kadkhodaee M, Kianian F, Abdi A, Sadeghipour H, Seifi B. Oxidative stress, nitric oxide and inflammation in the pathophysiology of varicocele and the effect of hydrogen sulfide as a potential treatment. Physioljgy and Pharmacology. 2019;23:249-260.
- Dutta S, Sengupta P. The Role of Nitric Oxide on Male and Female Reproduction. Malaysian Journal of Medical Sciences (MJMS). 2022;29(2):18-30. https://doi.org/10.21315/mjms2022.29.2.3
- Peña FJ, O’Flaherty C, Ortiz Rodríguez JM, Martín Cano FE, Gaitskell-Phillips GL, Gil MC, Ortega Ferrusola C. Redox regulation and oxidative stress: The particular case of the stallion spermatozoa. Antioxidants. 2019;8(11):567. https://doi.org/10.2174/10.3390/antiox8110567
- Pujianto DA, Oktarina M, Sharma Sharaswati IA, Yulhasri Y. Hydrogen peroxide has adverse effects on human sperm quality parameters, induces apoptosis, and reduces survival. Journal of Human Reproductive Sciences. 2021;14(2):121-128. https://doi.org/10.2174/10.4103/jhrs.jhrs_241_20
- Zargari F. Arsenic and Oxidative Stress: An Overview. In: Kumar N, ed. Arsenic Toxicity: Challenges and Solutions. Singapore: Springer; 2021.
- Zargari F, Rahaman MS. Arsenic, Oxidative Stress and Reproductive System. Journal of Xenobiotics. 2022;12(3):214-222. https://doi.org/10.3390/jox12030016
- Roy B. Physiology of stress and the involvement of reactive oxidative species: A mini-review. Quest International Journal of Medical and Health Sciences. 2018;1(1):19-24.
- Berby B, Bichara C, Rives-Feraille A, Jumeau F, Pizio PD, Sétif V, Sibert L, Dumont L, Rondanino C, Rives N. Oxidative Stress is associated with telomere interaction impairment and chromatin condensation defects in spermatozoa of infertile males. Antioxidants. 2021;10(4):593. https://doi.org/10.3390/antiox10040593
- Логинов П.В. Влияние витамина E (α-токоферола) на гипоталамо-гипофизарно-гонадную систему самцов белых крыс при окислительном стрессе, индуцированном природными токсикантами: дисс. ... канд. биол. наук. Астрахань: Астраханский государственный ун-т; 2004.
- Rocca MS, Foresta C, Ferlin A. Telomere length: Lights and shadows on their role in human reproduction. Biology of Reproduction. 2019;100(2):305-317. https://doi.org/10.1093/biolre/ioy208
- Asadi A, Ghahremani R, Abdolmaleki A, Rajaei F. Role of sperm apoptosis and oxidative stress in male infertility: A narrative review. International Journal of Reproductive BioMedicine. 2021;19(6):493-504. https://doi.org/10.18502/ijrm.v19i6.9371
- Tasçı T, Eldem V, Erkan M. Sodium Arsenic Alters the Gene Expression of some Steroidogenic Genes in TM3 Leydig Cell. Celal Bayar University Journal of Science. 2019;15(3):265-270. https://doi.org/10.18466/cbayarfbe.540544
- Hu Y, Li J, Lou B, Wu R, Wang G, Lu C, Wang H, Pi J, Xu Y. The Role of Reactive Oxygen Species in Arsenic Toxicity. Biomolecules. 2020;10(2):240. https://doi.org/10.3390/biom10020240
- Kim D, Park NY, Kang K, Calderwood SK, Cho DH, Bae IJ, Bunch H. Arsenic hexoxide has differential effects on cell proliferation and genome-wide gene expression in human primary mammary epithelial and MCF7 cells. Scientific Reports. 2021;11:3761. https://doi.org/10.1038/s41598-021-82551-3
- Scarlata E, O’Flaherty C. Antioxidant enzymes and male fertility: Lessons from knockout models. Antioxidants & Redox Signaling. 2020;32(8):569-580. https://doi.org/10.1089/ars.2019.7985
- Agarwal A, Leisegang K, Sengupta P. Oxidative stress in pathologies of male reproductive disorders. In: Reedy VR, ed. Pathology: Oxidative Stress and Dietary Antioxidants. Cambridge, MA (USA): Academic Press; 2020. https://doi.org/10.1016/B978-0-12-815972-9.00002-0
- Durairajanayagam D. Physiological role of reactive oxygen species in male reproduction. In: Henkel R, Samanta L, Agarwal A, eds. Oxidants, Antioxidants and Impact of the Oxidative Status in Male Reproduction. Cambridge, MA (USA): AcademicPress; 2019. https://doi.org/10.1016/b978-0-12-812501-4.00008-0
- Halpern J, Cooper C, Kasturi S, Brannigan RE. Infection, Inflammation, and Immunological Causes of Male Infertility. In: Lipshultz L, Howards S, Niederberger C, Lamb D, eds. Infertility in the Male. Cambridge: Cambridge University Press; 2023. https://doi.org/10.1017/9781108937054.018
- Agarwal A, Sharma RK, Nallella KP, Thomas AJ Jr, Alvarez JG, Sikka SC. Reactive oxygen species as an independent marker of male factor infertility. Fertility and Sterility. 2006;86(4):878-885. https://doi.org/10.1016/j.fertnstert.2006.02.111
- Loginov PV, Teply DL. Morphofunctional state of reproductive system in male rats under conditions of immobilization stress. Yestestvennye Nauki. 2014;4(49):47-54.
- Nsonwu-Anyanwu AC, Ekong ER, Offor SJ, Awusha OF, Orji OC, Umoh EI, Owhorji JA, Emetonjor FR, Usoro CAO. Heavy metals, biomarkers of oxidative stress and changes in sperm function: A case-control study. International Journal of Reproductive Biomedicine. 2019;17(3):163-174. https://doi.org/10.18502/ijrm.v17i3.4515
- Ding L, Li J, Li W, Fang Z, Li N, Wu S, Li J, Hong M. p53-and ROS-mediated AIF pathway involved in TGEV-induced apoptosis. Journal of Veterinary Medical Science. 2018;80(11):1775-1781. https://doi.org/10.1292/jvms.18-0104
- Barati E, Nikzad H, Karimian M. Oxidative stress and male infertility: Current knowledge of pathophysiology and role of antioxidant therapy in disease management. Cellular and Molecular Life Sciences. 2020;77(1):93-113. https://doi.org/10.1007/s00018-019-03253-8
- De Palma G, Ortiz A, Apostoli P. Effects of metallic elements on reproduction and development. In: Nordberg GF, Costa M, eds. Handbook on the Toxicology of Metals. Cambridge, MA (USA): Academic Press; 2022.
- Николаев А.А., Логинов П.В., Мавлютова Е.Б., Белявская А.А. Свободные радикалы и биоантиоксиданты в репродуктивных процессах (обзор литературы). Проблемы репродукции. 2018; 24(1):21-26. https://doi.org/10.17116/repro201824121-26
- Mayorga-Torres BJM, Camargo M, Cadavid ÁP, Cardona Maya WD. Estrés oxidativo: ¿un estado elular defectuoso para la función espermática? [Oxidative Stress: A Defective Cellular State for Sperm Function?]. Revista Chilena de Obstetricia y Ginecología. 2015;80(6):486-492. (In Spanish). https://doi.org/10.4067/S0717-75262015000600009
- Flores C, Márquez Y, Vilanova L, Mendoza C. Dienos conjugados y malondialdehído como indicadores de lipoperoxidación en semen de toros «Carora» [Conjugated Dienes and Malondialdehyde as Indicators of Lipid Peroxidation in Semen of «Carora» Bulls]. Revista Veterinaria. 2011;22(2):91-94. (In Spanish).
- Villa NA, Castaño D, Duque PC, Ceballos-Marquez A. Glutatione peroxidase and superoxide dismutase activities in blood and seminal plasma in colombian stallions. Revista Colombiana de Ciencias Pecuarias. 2012;25:64-70.


Рекомендуем статьи по данной теме:
Естественная беременность при сольтеряющей форме врожденной дисфункции коры надпочечников вследствие дефицита 21-гидроксилазы: клиническое наблюдение и обзор литературы.Проблемы репродукции. 2026;32(4):124-133
Влияние эндометриоидных кист яичников на исходы программ вспомогательных репродуктивных технологий.Проблемы репродукции. 2026;32(4):51-59
Возможности применения препаратов гранулоцитарного колониестимулирующего фактора в репродуктивной медицине.Проблемы репродукции. 2026;32(4):32-38
Эндометриоз как фиброзно-воспалительное заболевание: место ферментной терапии в стратегии комплексного лечения эндометриоз-ассоциированных состояний. Резолюция Совета экспертов.Проблемы репродукции. 2026;32(4):18-31
Перспективные методы лечения нейросенсорной тугоухости: клеточные технологии.Вестник оториноларингологии. 2026;91(3):100-106
Роль тератозооспермии при мужском бесплодии и невынашивании беременности.Проблемы репродукции. 2026;32(3):84-91
Расстройства сна и окислительный стресс.Журнал неврологии и психиатрии им. С.С. Корсакова. Спецвыпуски. 2026;126(5-2):68-73
Значение питания в профилактике саркопении у населения.Профилактическая медицина. 2026;29(5):113-118
Преждевременная недостаточность яичников: современные аспекты, проблемы и перспективы.Российский вестник акушера-гинеколога. 2026;26(2):97-104
Тест на отцовство.Проблемы репродукции. 2025;31(4):41-45