Генетические предикторы формирования плацентарной недостаточности у пациенток с гестационным сахарным диабетом без инсулинопотребности
Резюме
Патогенез гестационного сахарного диабета (ГСД) и плацентарной недостаточности (ПН) хорошо изучен для каждого вида патологии отдельно. Однако механизм формирования патологии фетоплацентарного комплекса у женщин с гестационными нарушениями углеводного обмена до конца не известен, что означает необходимость его детального изучения.
ЦЕЛЬ ИССЛЕДОВАНИЯ
Проанализировать ассоциации аллелей и генотипов полиморфных вариантов генов эндотелиальной дисфункции и нарушения углеводного обмена с формированием ПН у пациенток с ГСД без инсулинопотребности.
МАТЕРИАЛ И МЕТОДЫ
Проведено продольное когортное сравнительное исследование. В исследование были включены 120 пациенток во II—III триместре беременности с ГСД без инсулинопотребности, разделенные на две группы. Основную группу составили 70 женщин, беременность которых осложнилась субкомпенсированными и декомпенсированными формами ПН. В группу сравнения вошли 50 беременных без патологии фетоплацентарного комплекса. Проведен сравнительный анализ распределения аллелей и генотипов по полиморфным вариантам генов: PPARG (Pro12Ala C>G), TCF7L2 (IVS3 C>T), TCF7L2 (IVS4 G>T), VEGFA (C936T C>T), eNOS (G894T G>T), eNOS (T786C C>T). Проведена также также оценка межгенных взаимодействий.
РЕЗУЛЬТАТЫ
В нашем исследовании выявлена значимость полиморфного маркера eNOS (G894T G>T). При анализе роли генотипа в формировании изучаемой патологии у женщин основной группы преобладали генотипы, содержащие вариантную аллель 894T в гомо- и гетерозиготном состоянии, а у женщин группы сравнения чаще выявлялись гомозиготные генотипы с аллелью 894G. Анализ распределения аллелей исследуемых генов показал, что у женщин основной группы чаще встречаются генотипы, содержащие вариантную аллель T; напротив, у женщин группы сравнения чаще встречалась аллель G.
ВЫВОДЫ
Показана статистическая значимость полиморфизма eNOS (G894T G>T) в риске формирования ПН у пациенток с ГСД. Носительство в генотипе по меньшей мере одной вариантной аллели 894T увеличивает риск формирования ПН. Полученные результаты дают возможность предположить, что аллель T полиморфного локуса гена eNOS (G894T G>T) является аллелью риска формирования ПН у женщин с ГСД без инсулинопотребности.
Ключевые слова
- гестационный сахарный диабет
- плацентарная недостаточность
- задержка роста плода
- дисфункция эндотелия
- гены
Дата поступления: 29.05.2024
Дата принятия в печать: 19.11.2024
Дата публикации: 10.11.2025
Введение
Гестационный сахарный диабет (ГСД) является наиболее частым метаболическим нарушением во время беременности. По данным Международной федерации диабета, в 2021 г. доля ГСД в мире составила 16,7% — 21 млн родов у матерей с нарушениями углеводного обмена. Однако точный показатель частоты ГСД неизвестен, так как в мире отсутствуют единые критерии его диагностики [1—3].
Известно, что ГСД может быть генетически детерминированным. По данным литературы, чаще всего связь с ГСД имеют: фактор транскрипции 7-подобный 2 (TCFL7L2) — полиморфизмы IVS3 C>T и IVS4 G>T, рецептор, активируемый пролифератором пероксисом (PPARG), — полиморфизм Pro12Ala C>G [4, 5]. Сообщается, что TCF7L2 является основным регулятором выработки и процессинга инсулина в островках поджелудочной железы. Кроме того, TCF7L2 играет центральную роль в координации экспрессии и последующего процессинга проинсулина с образованием зрелого инсулина посредством нескольких генов-мишеней TCF7L2 и нижестоящей регуляторной сети [6, 7]. Ген TCF7L2 и его полиморфизмы ассоциированы с сахарным диабетом 2-го типа и ГСД в разных популяциях [4—6, 8].
Рецепторы, активируемые пролифератором пероксисом, известные как PPAR, принадлежат к надсемейству гормональных ядерных рецепторов, которые действуют как факторы транскрипции, регулирующие экспрессию генов. Известно, что PPAR играют ключевую роль в регуляции дифференцировки клеток, метаболизме глюкозы и липидов и воспалении. При длительных периодах гипогликемии PPAR участвуют в поставке жирных кислот и кетоновых тел из жировой ткани в качестве источника энергии. Мутация гена PPARG человека связана с повышенной резистентностью к инсулину, гипертонией и диабетом [9, 10].
У женщин с ГСД повышается частота плацентарных нарушений во время беременности. Ведущая роль в патогенезе связанных с гипергликемией осложнений беременности принадлежит дисфункции эндотелия (ДЭ) и ассоциированным с ней нарушениям микроциркуляции [1, 11—14]. Сообщается, что ДЭ определяется как дисбаланс между продукцией вазодилатирующих, ангиопротективных, антипролиферативных, вазоконстриктивных, протромботических и пролиферативных факторов [15, 16]. Фактор роста эндотелия сосудов типа A (VEGF-A) и оксид азота (NO) являются наиболее важными регуляторами сосудистого гомеостаза.
Так, VEGF-A участвует в васкулогенезе путем индукции пролиферации клеток и вазодилатации, стимуляции апоптоза, привлечения воспалительных клеток к месту повреждения. Он стимулирует появление фенестраций между эндотелиальными клетками капилляров и венул и изменение белков в межклеточных соединениях. Как следствие, повышается проницаемость стенки сосуда и облегчается миграция эндотелиоцитов [17—19].
Показано, что NO выполняет важнейшие функции, такие как регуляция кровотока и сосудистого тонуса, подавление пролиферации и миграции гладкомышечных клеток и взаимодействие лейкоцитов с эндотелием. В процессе базального синтеза NO эндотелием основную роль играет эндотелиальная синтаза NO (eNOS). Только при нормальной экспрессии eNOS происходит вазодилатация, необходимая для удовлетворительной инвазии трофобласта [20, 21].
Изменение концентрации названных ангиогенных факторов, обусловленное ДЭ при ГСД, приводит к структурному ремоделированию сосудистого русла, развитию ангиопатий, в результате чего может сформироваться плацентарная недостаточность (ПН) с исходом в нарушение маточно-плацентарного кровотока, задержку роста плода вплоть до его антенатальной гибели.
Таким образом, генетическая детерминация ГСД и его патогенетическая связь с ДЭ и ПН обусловливают необходимость изучения генетических предикторов ПН у пациенток с ГСД.
Цель исследования — проанализировать ассоциации аллелей и генотипов полиморфных вариантов генов эндотелиальной дисфункции и нарушения углеводного обмена с формированием ПН у пациенток с ГСД без инсулинопотребности.
Материал и методы
Проведено продольное когортное сравнительное исследование на базе ФГБУ «Уральский научно-исследовательский институт материнства и младенчества» Минздрава России. Исследование одобрено этическим комитетом ФГБУ НИИ ОММ Минздрава России (протокол №23 от 07.12.2021). Набор материала проведен с 01.01.2021 по 31.01.2023.
В исследование были включены 120 пациенток во II—III триместре беременности с ГСД без инсулинопотребности, разделенные на две группы. Основную группу составили 70 женщин, беременность которых осложнилась субкомпенсированными и декомпенсированными формами ПН. В группу сравнения вошли 50 беременных без патологии фетоплацентарного комплекса. Критерии невключения: ГСД с необходимостью инсулинотерапии, I триместр беременности, многоплодие, врожденные пороки развития и водянка плода.
Изучено четыре полиморфных варианта локусов в генах PPARG, TCF7L2, VEGFA, eNOS(табл. 1). Проведен сравнительный анализ распределения аллелей и генотипов по полиморфным вариантам генов: PPARG (Pro12Ala C>G), TCF7L2 (IVS3 C>T), TCF7L2 (IVS4 G>T), VEGFA (C936T C>T), eNOS (G894T G>T), eNOS (T786C T>C). Для генотипирования образцы ДНК получали из лимфоцитов периферической крови, после чего поставлена полимеразная цепная реакция в режиме реального времени. Применялись наборы реагентов производства ООО «Научно-производственная фирма Синтол» (Россия).
Таблица 1. Исследуемые гены и полиморфизмы
Ген | Белковый продукт | Полиморфизм | SNT_ID | Варианты генотипа |
PPARG | Гамма-рецептор, активируемый пролифератором пероксисом | Pro12Ala C>G | rs1801282 | CC CG GG |
TCF7L2 | Фактор транскрипции 7-подобный 2 | IVS3 C>T | rs7903146 | CC CT TT |
TCF7L2 | Фактор транскрипции 7-подобный 2 | IVS4 G>T | rs12255372 | GG GT TT |
VEGFA | Фактор роста эндотелия A | C936T C>T | rs3025039 | CC CT TT |
eNOS | Эндотелиальная синтаза оксида азота | G894T G>T | rs1799983 | GG GT TT |
eNOS | Эндотелиальная синтаза оксида азота | T786C T>C | rs2070744 | CC CT TT |
Детекция и интерпретация результатов исследования осуществлялись с помощью программного обеспечения прибора.
Статистический анализ данных выполнен с использованием пакета прикладных программ Statistica 12.0. Различия между непараметрическими переменными обнаруживали с помощью критерия χ2 Пирсона (Pearson). Оценивали показатель отношения шансов (ОШ) и доверительный интервал (95% ДИ). Нулевая гипотеза отвергалась при p≤0,05. Распределение частот аллелей и генотипов исследуемых полиморфизмов генов в исследуемых группах соответствовало равновесию Харди—Вайнберга (тест проведен с помощью критерия χ2 с использованием программы Hardy—Weinberg equilibrium).
Для установления роли полиморфизмов исследуемых генов в риске формирования ПН у женщин с ГСД использованы общая, мультипликативная и доминантная модели. Для оценки межгенных взаимодействий нами применена модификация метода MDR — метод GeneralizedMDR (https://sourceforge.net/projects/mdr). С помощью метода GMDR построена дендрограмма для визуализации изучаемых межгенных взаимодействий.
Результаты
Анализ распределения генотипов по полиморфным локусам исследованных генов показал значимость полиморфного маркера eNOS (G894T G>T) в риске формирования ПН у пациенток с ГСД. Распределение генотипов у пациенток исследуемых групп (общая модель) по полиморфному маркеру eNOS (G894T G>T) выявило следующую тенденцию. У женщин основной группы преобладали генотипы, содержащие вариантную аллель 894T в гомо- и гетерозиготном состоянии (ОШ=1,85; 95% ДИ 1,12—3,06; p≤0,05), а в группе сравнения чаще выявлялись гомозиготные генотипы с аллелью 894G (ОШ=0,42; 95% ДИ 0,85—0,21; p≤0,05), TT (ОШ=4,59; 95% ДИ 1,34—15,78; p≤0,05).
В полиморфном локусе TCF7L2 (IVS4 G>T) у женщин основной группы реже встречались генотипы GT (ОШ=0,96; 95% ДИ 0,43—2,16; p≤0,05) и TT (ОШ=0,07; 95% ДИ 0,00—1,39; p≤0,05) относительно женщин группы сравнения. У женщин группы сравнения генотип GG (ОШ=1,51; 95% ДИ 0,69—3,3; p≤0,05) встречался чаще, чем у женщин основной группы. Однако, принимая во внимание значение 95% ДИ, эти данные нельзя считать статистически значимыми.
В полиморфных локусах генов PPARG (Pro12Ala C>G), TCF7L2 (IVS3 C>T), TCF7L2 (IVS4 G>T), VEGFA (C936T C>T), eNOS (T786C T>C) статистически значимые различия между группами не выявлены (p>0,5) (табл. 2).
Таблица 2. Распределение генотипов по полиморфным локусам в исследуемых группах (общая модель)
Генотип | Группа (частота) | χ2 | p | OR | ||
основная (n=70) | сравнения (n=50) | значение | 95% CI | |||
eNOS (G894T G>T) GG | 0,47 | 0,68 | 5,98 | 0,05 | 0,42 | 0,21—0,85 |
eNOS (G894T G>T) GT | 0,44 | 0,30 | 1,85 | 1,12—3,06 | ||
eNOS (G894T G>T) TT | 0,08 | 0,02 | 4,59 | 1,34—15,78 | ||
PPARG (Pro12Ala C>G) CC | 0,7 | 0,62 | 3,85 | 0,15 | 1,43 | 0,66—3,08 |
PPARG (Pro12Ala C>G) CT | 0,26 | 0,38 | 0,56 | 0,26—1,23 | ||
PPARG (Pro12Ala C>G) TT | 0,04 | 0 | 5,24 | 0,26—103,7 | ||
TCFL7L2 (IVS3 C>T) CC | 0,63 | 0,64 | 0,02 | 1,00 | 0,95 | 0,45—2,02 |
TCFL7L2 (IVS3 C>T) CT | 0,33 | 0,32 | 1,04 | 0,48—2,26 | ||
TCFL7L2 (IVS3 C>T) TT | 0,04 | 0,04 | 1,07 | 0,17—6,68 | ||
TCF7L2 (IVS4 G>T) GG | 0,73 | 0,64 | 5,90 | 0,05 | 1,51 | 0,69—3,3 |
TCF7L2 (IVS4 G>T) GT | 0,27 | 0,28 | 0,96 | 0,43—2,16 | ||
TCF7L2 (IVS4 G>T) TT | 0 | 0,08 | 0,07 | 0,00—1,39 | ||
VEGFA (C936T C>T) CC | 0,61 | 0,68 | 1,74 | 0,42 | 0,75 | 0,35—1,61 |
VEGFA (C936T C>T) CT | 0,36 | 0,32 | 1,18 | 0,55—2,55 | ||
VEGFA (C936T C>T) TT | 0,03 | 0 | 3,67 | 0,17—78,5 | ||
eNOS (T786C T>C) TT | 0,11 | 0,12 | 0,13 | 0,93 | 0,95 | 0,31—2,92 |
eNOS (T786C T>C) TC | 0,51 | 0,54 | 0,9 | 0,44—1,87 | ||
eNOS (T786C T>C) CC | 0,37 | 0,34 | 1,15 | 0,54—2,45 | ||
Анализ распределения аллелей исследуемых генов (мультипликативная модель) по полиморфному локусу eNOS (G894T G>T) показал, что у женщин основной группы чаще встречаются генотипы, содержащие вариантную аллель T (ОШ=0,46; 95% ДИ 0,25—0,87; p≤0,05), а у женщин группы сравнения чаще выявляли аллель G (ОШ=2,16; 95% ДИ 1,15—4,06; p≤0,05) (табл. 3). Распределение аллелей в полиморфных локусах генов PPARG (Pro12Ala C>G), TCF7L2 (IVS3 C>T), TCF7L2 (IVS4 G>T), VEGFA (C936T C>T), eNOS (T786C T>C) между группами статистически значимо не различалось (p>0,5).
Таблица 3. Распределение частот аллелей по полиморфным локусам в исследуемых группах (мультипликативная модель)
Генотип | Группа (частота) | χ2 | p | OR | ||
основная (n=70) (аллелей 140) | сравнения (n=50) (аллелей 100) | значение | 95% CI | |||
eNOS (G894T G>T) G | 0,83 | 0,69 | 5,8 | 0,01 | 0,46 | 0,25—0,87 |
eNOS (G894T G>T) T | 0,17 | 0,31 | 2,16 | 1,15—4,06 | ||
PPARG (Pro12Ala C>G) C | 0,83 | 0,81 | 0,04 | 0,84 | 1,13 | 0,58—2,21 |
PPARG (Pro12Ala C>G) G | 0,17 | 0,19 | 0,88 | 0,45—1,71 | ||
TCFL7L2 (IVS3 C>T) C | 0,79 | 0,80 | 0,00 | 0,98 | 0,96 | 0,51—1,81 |
TCFL7L2 (IVS3 C>T) T | 0,21 | 0,20 | 1,05 | 0,55—1,98 | ||
TCF7L2 (IVS4 G>T) C | 0,86 | 0,78 | 2,36 | 0,12 | 1,80 | 0,91—3,53 |
TCF7L2 (IVS4 G>T) T | 0,14 | 0,22 | 0,56 | 0,28—1,1 | ||
VEGFA (C936T C>T) C | 0,79 | 0,84 | 0,57 | 0,45 | 0,73 | 0,37—1,43 |
VEGFA (C936T C>T) T | 0,21 | 0,16 | 1,37 | 0,70—2,69 | ||
eNOS (T786C T>C) T | 0,37 | 0,39 | 0,02 | 0,87 | 0,92 | 0,55—1,57 |
eNOS (T786C T>C) C | 0,63 | 0,61 | 1,08 | 0,64—1,83 | ||
Проведенное нами исследование частоты выявления генотипов и аллелей (доминантная модель) показало статистическую значимость полиморфизма eNOS (G894T G>T) в риске формирования плацентарной недостаточности. Носительство в генотипе по меньшей мере одной вариантной аллели 894T увеличивает риск формирования ПН (ОШ=2,38; 95% ДИ 1,12—5,08; p≤0,05), а генотип eNOS (G894T G>T) GG чаще регистрируется у женщин группы сравнения (ОШ=0,42; 95% 0,20—0,90; p≤0,05). В отношении полиморфных локусов генов PPARG (Pro12Ala C>G), TCF7L2 (IVS3 C>T), TCF7L2 (IVS4 G>T), VEGFA (C936T C>T), eNOS (T786C T>C) статистически значимые различия между группами не выявлены (p>0,5) (табл. 4).
Таблица 4. Распределение генотипов по полиморфным локусам в исследуемых группах (доминантная модель)
Генотип | Группа (частота) | χ2 | p | OR | ||
основная (n=70) | сравнения (n=50) | значение | 95% CI | |||
eNOS (G894T G>T) GG | 0,47 | 0,68 | 5,15 | 0,02 | 0,42 | 0,20—0,90 |
eNOS (G894T G>T) GT+TT | 0,53 | 0,32 | 2,38 | 1,12—5,08 | ||
PPARG (Pro12Ala C>G) CC | 0,70 | 0,62 | 0,52 | 0,47 | 1,43 | 0,66—3,08 |
PPARG (Pro12Ala C>G) CG+GG | 0,30 | 0,38 | 0,7 | 0,32—1,5 | ||
TCFL7L2 (IVS3 C>T) CC | 0,63 | 0,64 | 0,00 | 0,95 | 0,95 | 0,45—2,02 |
TCFL7L2 (IVS3 C>T) CT+TT | 0,37 | 0,36 | 1,05 | 0,49—2,23 | ||
TCF7L2 (IVS4 G>T) GG | 0,73 | 0,64 | 0,70 | 0,40 | 1,50 | 0,7—3,3 |
TCF7L2 (IVS4 G>T) GT+TT | 0,27 | 0,36 | 0,66 | 0,3—1,44 | ||
VEGFA (C936T C>T) CC | 0,61 | 0,68 | 0,30 | 0,58 | 0,75 | 0,35—1,61 |
VEGFA (C936T C>T) CT+TT | 0,39 | 0,32 | 1,33 | 0,62—2,87 | ||
eNOS (T786C T>C) TT | 0,11 | 0,12 | 0,01 | 0,93 | 0,95 | 0,31—2,92 |
eNOS (T786C T>C) TC+CC | 0,89 | 0,88 | 1,06 | 0,34—3,26 | ||
При оценке межгенных взаимодействий получены данные о том, что наиболее сильное синергическое взаимодействие характерно для локусов G894T G>T и T786C T>C гена eNOS. С отдаленным аддитивным эффектом взаимодействуют полиморфные локусы генов eNOS, VEGFA и PPARG, последние взаимодействуют между собой с умеренным антагонизмом (рис. 1 на цв. вклейке). Наибольшим предсказательным потенциалом в отношении формирования плацентарной недостаточности характеризуется локус eNOS (G894T G>T), на долю которого приходится 2,81% фенотипической энтропии (рис. 2 на цв. вклейке).
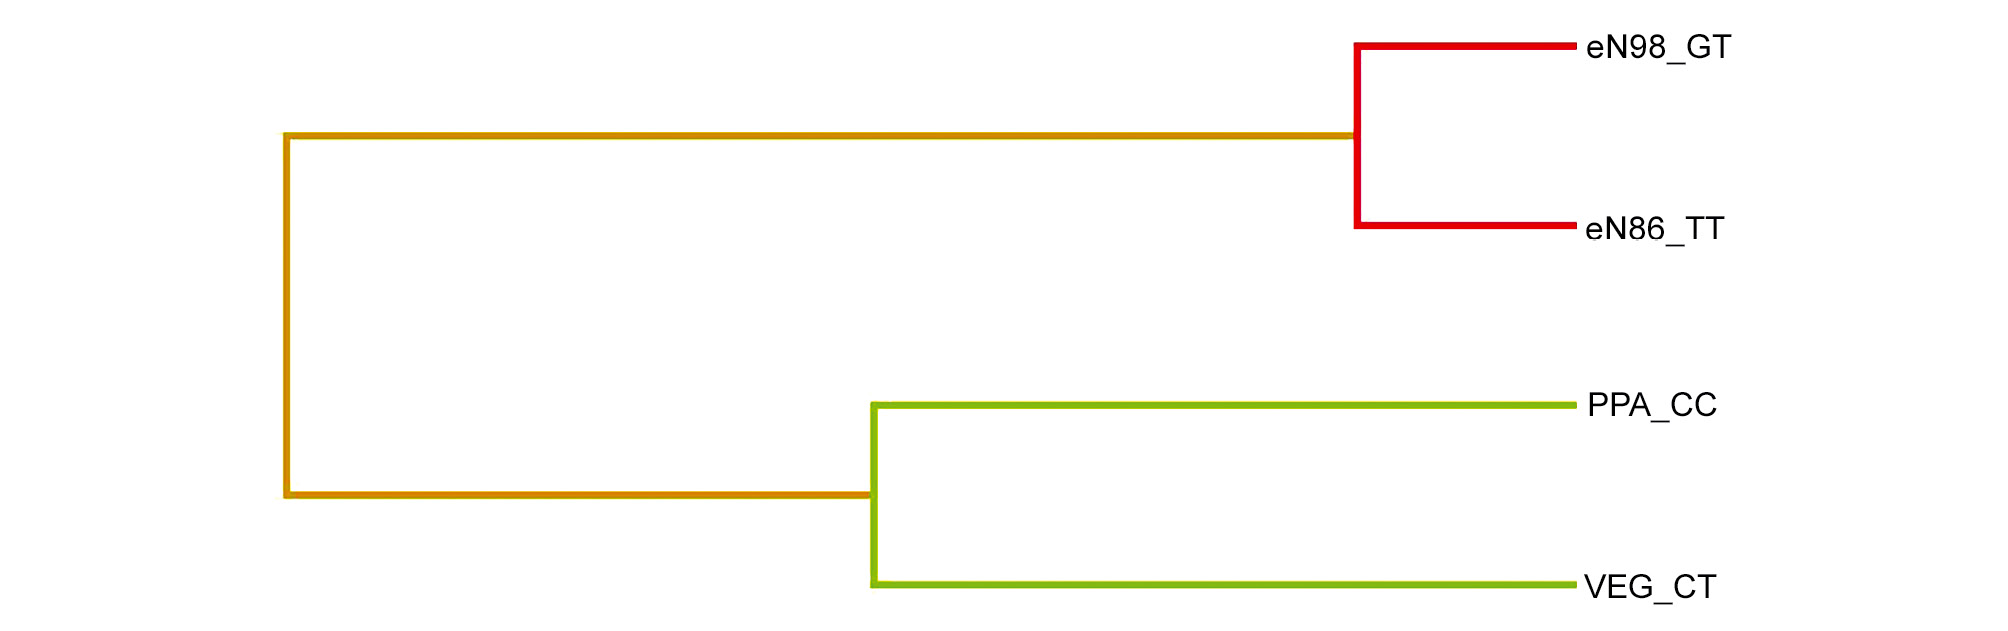
Рис. 1. Дендрограмма взаимодействий полиморфных локусов исследуемых генов.
Длинные линии в дендрограмме описывают слабую взаимосвязь генов. Чем короче линии, соединяющие два предиктора, тем сильнее взаимодействие. Здесь и на рис. 2: красные линии — сильные синергические взаимодействия, желтые линии — отдаленный аддитивный эффект, зеленые линии — умеренный антагонизм.
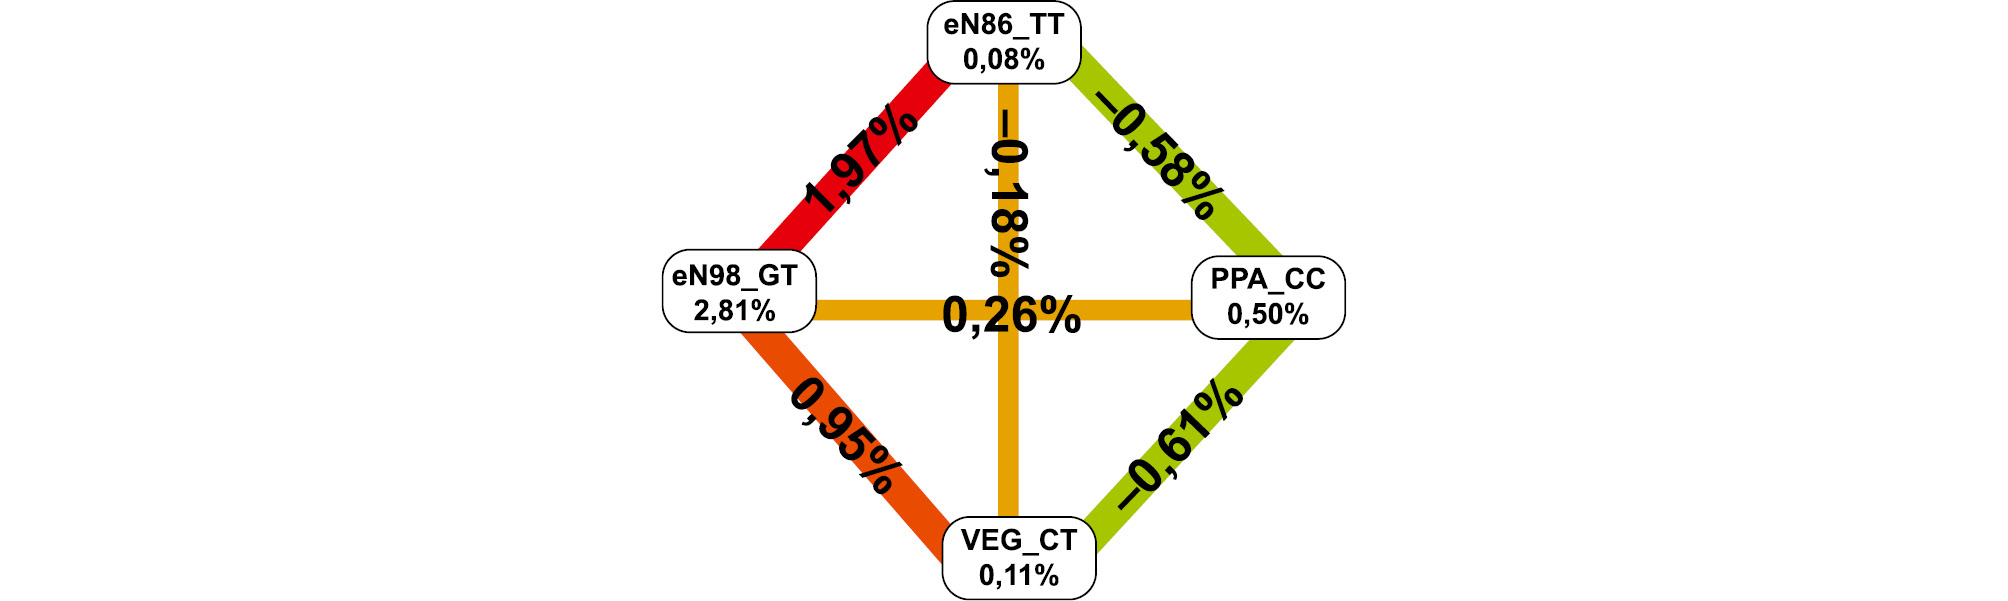
Рис. 2. Граф взаимодействий исследуемых генов.
Обсуждение
В настоящее время проведено большое количество молекулярно-генетических исследований с использованием как кандидатного, так и полигеномного подходов для выявления генетических причин ГСД и повреждения фетоплацентарного комплекса при данной патологии. В большинстве случаев оценивалась роль полиморфизма отдельных кандидатных генов в риске развития либо ГСД, либо плацентарной недостаточности без учета их роли и взаимодействия при ПН на фоне ГСД.
Полиморфизм eNOS (G894T G>T) является структурным полиморфизмом экзона 7 гена, кодирующего eNOS, и приводит к замене глутамина аспаргином в позиции 298 самого фермента (Glu298Asp) [22, 23]. В научной литературе мало данных о связи полиморфизма G894T и плацентарной недостаточности. Получены данные о связи eNOS и ГСД. S. Ostafiichuk и соавт. в своем исследовании выявили, что снижение активности гена eNOS (G894T G>T) при наличии гомозиготной вариантной аллели TT является инициатором нарушений липидного и углеводного обмена у беременных [24]. Сообщается о связи G894T TT с нарушением маточно-плацентарного кровотока и задержкой роста плода (ЗРП) [25]. Исследований, посвященных изучению вклада полиморфизма eNOS (T786C T>C) в развитие ГСД или ПН, в литературе не найдено.
Ген TCF7L2 этого фактора расположен на хромосоме 10q25.3 [26]. Исследований, подтверждающих или опровергающих связь полиморфизма данного гена с ПН, нет, в нашем исследовании не выявлена роль этого гена в формировании ПН у пациенток с ГСД.
У пациенток с ГСД экспрессия PPARG подавляется как в тканях плаценты, так и в жировых тканях [27, 28]. Другими исследователями показано, что PPARG активировался у пациентов с ГСД [29]. В нашем исследовании не выявлена значимость этого маркера в формировании ПН у пациенток с ГСД без инсулинопотребности, однако в литературе описаны противоположные данные. Отмечено, что в плацентах с ЗРП экспрессия PPARG была снижена [30, 31]. S. Lane и соавт. отметили, что фармакологическая активация рецептора, запускаемого пероксисомным пролифератором, защищает от ЗРП, связанной с гипоксией [32]. Исследование, проведенное О.А. Мелкозеровой и соавт., показало, что наличие сочетания однонуклеотидных полиморфизмов генов PPARG (Pro12Ala C>G) и eNOS (G894T G>T) свидетельствует о высоком риске развития у пациенток перинатальных осложнений ГСД на фоне вспомогательных репродуктивных технологий [33]. В нашем исследовании также не обнаружен вклад полиморфизма C936T C>T гена VEGFA в формирование ПН у пациенток с ГСД. В литературе подобные исследования не найдены.
Выводы
Проведенное нами исследование показало статистическую значимость полиморфизма eNOS (G894T G>T) в риске формирования плацентарной недостаточности. Носительство в генотипе, по крайней мере, одной вариантной аллели 894T увеличивает риск формирования плацентарной недостаточности. Применение метода многофакторного анализа с целью установления роли межгенных взаимодействий в прогнозировании плацентарной недостаточности при гестационном сахарном диабете еще раз подтвердило роль гетерозиготного полиморфизма eNOS (G894T G>T), на долю которого приходится почти 3,0% фетотипической энтропии. Ассоциация плацентарной недостаточности с этим полиморфизмом показана в нашем исследовании. Полученные результаты дают возможность предположить, что аллель T полиморфного локуса гена eNOS (G894T G>T) является аллелью риска формирования плацентарной недостаточности у женщин с гестационным сахарным диабетом. Выявление предикторов формирования патологии фетоплацентарного комплекса у женщин с гестацонным сахарным диабетом позволит прогнозировать эту патологию и снизить долю перинатальных осложнений.
Участие авторов:
Концепция и дизайн исследования — Путилова Н.В., Третьякова Т.Б.
Сбор и обработка материала — Сытых О.Н.
Статистическая обработка — Сытых О.Н.
Написание текста — Третьякова Т.Б., Сытых О.Н.
Редактирование — Путилова Н.В.
Финансирование. Работа выполнена в рамках государственного задания по научно-исследовательской работе Министерства здравоохранения Российской Федерации.
Авторы заявляют об отсутствии конфликта интересов.
- Международная диабетическая федерация: информация о гестационном сахарном диабете. Ссылка активна на 29.05.24. https://idf.org/about-diabetes/gestational-diabetes
- Мищенко О.И., Мозес В.Г., Косинова М.В., Благовещенская О.П., Мозес К.Б., Рудаева Е.В., Захаров И.С., Елгина С.И. Гестационный сахарный диабет — современные представления об эпидемиологии, патогенезе, диагностике и профилактике осложнений. Забайкальский медицинский вестник. 2020; (1):111-120. https://doi.org/10.52485/19986173_2020_1_111
- Plows JF, Stanley JL, Baker PN, Reynolds CM, Vickers MH. The Pathophysiology of Gestational Diabetes Mellitus. International Journal of Molecular Sciences. 2018;19(11):3342. PMID: 30373146; PMCID: PMC6274679. https://doi.org/10.3390/ijms19113342
- Башмакова Н.В., Третьякова Т.Б., Фролухина О.Б., Дерябина Е.Г. Гестационный сахарный диабет — генетические аспекты. Проблемы репродукции. 2019;25(6):22-28. https://doi.org/10.17116/repro20192506122
- Chang S, Wang Z, Wu L, Lu X, Shangguan S, Xin Y, Li L, Wang L. Association between TCF7L2 polymorphisms and gestational diabetes mellitus: A meta-analysis. Journal of Diabetes Investigation. 2017;8(4):560-570. https://doi.org/10.1111/jdi.12612
- Пакин В.С. Молекулярно-генетические аспекты гестационного сахарного диабета. Проблемы эндокринологии. 2017;63(3): 204-207. https://doi.org/10.14341/probl2017633204-207
- Zhou Y, Park SY, Su J, Bailey K, Ottosson-Laakso E, Shcherbina L, Oskolkov N, Zhang E, Thevenin T, Fadista J, Bennet H, Vikman P, Wierup N, Fex M, Rung J, Wollheim C, Nobrega M, Renström E, Groop L, Hansson O. TCF7L2 is a master regulator of insulin production and processing. Human Molecular Genetics. 2014;23(24): 6419-6431. https://doi.org/10.1093/hmg/ddu359
- Wu L, Cui L, Tam WH, Ma RC, Wang CC. Genetic variants associated with gestational diabetes mellitus: a meta-analysis and subgroup analysis. Scientific Reports. 2016;29:6:30539. https://doi.org/10.1038/srep30539
- Janani C, Ranjitha Kumari BD. PPAR gamma gene-a review. Diabetes and Metabolic Syndrome: Clinical Research and Reviews. 2015; 9(1):46-50.
- Camacho A, Huang JK, Delint-Ramirez I, Yew Tan C, Fuller M, Lelliott CJ, Vidal-Puig A, Franklin RJ. Peroxisome proliferator-activated receptor gamma-coactivator-1 alpha coordinates sphingolipid metabolism, lipid raft composition and myelin protein synthesis. European Journal of Neuroscience. 2013;38:2672-2683.
- Araujo Júnior E, Zamarian AC, Caetano AC, Peixoto AB, Nardozza LM. Physiopathology of late-onset fetal growth restriction. Minerva Obstetrics and Gynecology. 2021;73(4):392-408. https://doi.org/10.23736/S2724-606X.21.04771-7
- Szmuilowicz ED, Josefson JL, Metzger BE. Gestational Diabetes Mellitus. Endocrinology and Metabolism Clinics of North America. 2019;48(3):479-493. https://doi.org/10.1016/j.ecl.2019.05.001
- Gascho CLL, Leandro DMK, Ribeiro E, Silva T, Silva JC. Predictors of cesarean delivery in pregnant women with gestational diabetes mellitus. Revista Brasileira de Ginecologia e Obstetrícia. 2017; 39:60-65. https://doi.org/10.1055/s-0037-1598644
- Bedell S, Hutson J, de Vrijer B, Eastabrook G. Effects of Maternal Obesity and Gestational Diabetes Mellitus on the Placenta: Current Knowledge and Targets for Therapeutic Interventions. Current Vascular Pharmacology. 2021;19(2):176-192. https://doi.org/10.2174/1570161118666200616144512
- Alphonsus CS, Rodseth RN. The Endothelial Glycocalyx: A Review of the Vascular Barrier. Anaesthesia. 2014;69(7):777-784. https://doi.org/10.1111/anae.12661
- Masola V, Zaza G, Onisto M, Lupo A, Gambaro G. Glycosaminoglycans, proteoglycans and sulodexide and the endothelium: biological roles and pharmacological effects. International Angiology. 2014;33(3):243-254.
- Alfaidy N, Hoffmann P, Boufettal H, Samouh N, Aboussaouira T, Benharouga M, Feige JJ, Brouillet S. The multiple roles of EG-VEGF/PROK1 in normal and pathological placental angiogenesis. BioMed Research International. 2014;2014:451906. Epub 2014 May 15. PMID: 24955357; PMCID: PMC4052057. https://doi.org/10.1155/2014/451906
- Aplin JD, Myers JE, Timms K, Westwood M. Tracking placental development in health and disease. Nature Reviews Endocrinology. 2020;16(9):479-494. https://doi.org/10.1038/s41574-020-0372-6
- Melincovici CS, Boşca AB, Şuşman S, Mărginean M, Mihu C, Istrate M, Moldovan IM, Roman AL, Mihu CM. Vascular endothelial growth factor (VEGF) — key factor in normal and pathological angiogenesis. Romanian Journal of Morphology and Embryology. 2018;59(2):455-467.
- Förstermann U, Sessa WC. Nitric oxide synthases: regulation and function. European Heart Journal. 2012;33(7):829-837, 837a-837d. https://doi.org/10.1093/eurheartj/ehr304
- Ниаури Д.А. Функция эндотелия при беременности и метаболический синдром. Медицина XXI века. 2008;(13):35-40.
- Karimian M, Yaqubi S, Karimian Z. The eNOS-G894T genetic polymorphism and risk of preeclampsia: A case-control study, an updated meta-analysis, and a bioinformatic assay. Cytokine. 2023;169: 156283. https://doi.org/10.1016/j.cyto.2023.156283
- Куба А.А., Никонова Ю.М., Феликсова О.М., Хромова А.В., Бебякова Н.А. Ассоциация генетического полиморфизма гена эндотелиальной синтазы оксида азота с сердечно-сосудистой патологией. Современные проблемы науки и образования. 2015;(3).
- Ostafiichuk SO, Prudnikov PM, Volosovskiy PR, Zabolotnov VO, Boichuk OH, Henyk NI. Associations of enos glu298asp (g894t) endothelial dysfunction gene polymorphisms with metabolic disorders in pathological pregnancy. Wiadomości Lekarskie. 2022;75(5 pt 2): 1362-1369. https://doi.org/10.36740/WLek202205224
- Fatini C, Sticchi E, Gensini F, Genuardi M, Tondi F, Gensini GF, Riviello C, Parretti E, Mello G, Abbate R. Endothelial nitric oxide synthase gene influences the risk of pre-eclampsia, the recurrence of negative pregnancy events, and the maternal-fetal flow. Journal of Hypertension. 2006;24(9):1823-1829. https://doi.org/10.1097/01.hjh.0000242407.58159.87
- Lyssenko V, Lupi R, Marchetti P, Del Guerra S, Orho-Melander M, Almgren P, Sjögren M, Ling C, Eriksson KF, Lethagen AL, Mancarella R, Berglund G, Tuomi T, Nilsson P, Del Prato S, Groop L. Mechanisms by which common variants in the TCF7L2 gene increase risk of type 2 diabetes. The Journal of Clinical Investigation. 2007;117(8):2155-2163.
- Capobianco E, Martinez N, Fornes D, Higa R, Di Marco I, Basualdo MN, Faingold MC, Jawerbaum A. PPAR activation as a regulator of lipid metabolism, nitric oxide production and lipid peroxidation in the placenta from type 2 diabetic patients. Molecular and Cellular Endocrinology. 2013;377:7-15.
- Gao Y, She R, Sha W. Gestational diabetes mellitus is associated with decreased adipose and placenta peroxisome proliferator-activator receptor γ expression in a Chinese population. Oncotarget. 2017;8(69):113928-113937. https://doi.org/10.18632/oncotarget.23043
- Wojcik M, Mac-Marcjanek K, Nadel I, Wozniak L, Cypryk K. Gestational diabetes mellitus is associated with increased leukocyte peroxisome proliferator-activated receptor gamma expression. Archives of Medical Science. 2015;11:779-787.
- Díaz M, Bassols J, López-Bermejo A, Gómez-Roig MD, de Zegher F, Ibáñez L. Placental Expression of Peroxisome Proliferator-Activated Receptor γ (PPARγ): Relation to Placental and Fetal Growth. The Journal of Clinical Endocrinology and Metabolism. 2012;97(8): E1468-E1472. https://doi.org/10.1210/jc.2012-1064
- Gosseaume C, Fournier T, Jéru I, Vignaud ML, Missotte I, Archambeaud F, Debussche X, Droumaguet C, Fève B, Grillot S, Guerci B, Hieronimus S, Horsmans Y, Nobécourt E, Pienkowski C, Poitou C, Thissen JP, Lascols O, Degrelle S, Tsatsaris V, Vigouroux C, Vatier C. Perinatal, metabolic, and reproductive features in PPARG-related lipodystrophy. European Journal of Endocrinology. 2023; 188(3):lvad023. https://doi.org/10.1093/ejendo/lvad023
- Lane SL, Dodson RB, Doyle AS, Park H, Rathi H, Matarrazo CJ, Moore LG, Lorca RA, Wolfson GH, Julian CG. Pharmacological activation of peroxisome proliferator-activated receptor γ (PPAR-γ) protects against hypoxia-associated fetal growth restriction. The FASEB Journal. 2019;33(8):8999-9007. https://doi.org/10.1096/fj.201900214R
- Мелкозерова О.А., Мурзин А.В., Башмакова Н.В., Третьякова Т.Б., Дерябина Е.Г., Жарова Н.В., Семенов А.Ю. Роль межгенных взаимодействий в формировании перинатальных осложнений гестационного сахарного диабета у беременных после вспомогательных репродуктивных технологий. Проблемы репродукции. 2024;30(2):51-61. https://doi.org/10.17116/repro20243002151


Рекомендуем статьи по данной теме:
Плацентарные нейротрофины — новые перспективные предикторы осложненного течения беременности и неблагоприятных перинатальных исходов.Российский вестник акушера-гинеколога. 2026;26(4):62-69
К вопросу о влиянии гестационного сахарного диабета на здоровье матери и ребенка после родов (обзор научных публикаций за 10-летний период).Российский вестник акушера-гинеколога. 2026;26(3):66-73
Вагинальная микробиота в I триместре беременности и формирование плацентарной недостаточности.Российский вестник акушера-гинеколога. 2026;26(3):12-22
Определитель матрицы неравновесия по сцеплению может идентифицировать гены заболевания в полногеномных данных по однонуклеотидному полиморфизму низкой плотности.Молекулярная генетика, микробиология и вирусология. 2025;43(4-2):97-101
К вопросу о факторах риска недостаточного роста плода.Российский вестник акушера-гинеколога. 2025;25(6):52-58
Гестационный сахарный диабет после экстракорпорального оплодотворения: особенности течения беременности, акушерские и перинатальные исходы (предварительные результаты собственного исследования).Российский вестник акушера-гинеколога. 2025;25(6):37-44
Возможности применения метода проточной цитометрии для оценки дисфункции эндотелия в кардиохирургии.Хирургия. Журнал им. Н.И. Пирогова. 2025;(10-2):42-47
«Метаболическое здоровье» и функция эндотелия у женщин с синдромом поликистозных яичников.Российский вестник акушера-гинеколога. 2025;25(5):27-34
Предикторы потребности в инсулинотерапии при гестационном сахарном диабете и связь потребности в инсулине с состоянием новорожденных.Российский вестник акушера-гинеколога. 2025;25(4):73-79
Корреляция между дисфункцией эндотелия и сенсоневральной тугоухостью.Вестник оториноларингологии. 2025;90(3):13-18