Эритроферрон и его роль в регуляции обмена железа: молекулярные механизмы и клиническое значение
Журнал: Профилактическая медицина. 2025;28(10):123-128.
DOI: 10.17116/profmed202528101123
Прочитано: 1273 раза
Резюме
Эритроферрон (ERFE) представляет собой белок, играющий ключевую роль в регуляции обмена железа в организме. Он синтезируется преимущественно в селезенке и костном мозге и оказывает влияние на уровни гепсидина — гормона, который регулирует абсорбцию железа в кишечнике и его перераспределение в организме.
ЦЕЛЬ ИССЛЕДОВАНИЯ
Описать роль ERFE в регуляции обмена железа, а также возможные молекулярные механизмы, лежащие в основе его действия.
МАТЕРИАЛЫ И МЕТОДЫ
Выполнен поиск отечественных и зарубежных публикаций по исследуемой теме в базах данных PubMed, РИНЦ и eLibrary с использованием следующих ключевых слов: «эритроферрон» («erithroferron»), «железо» («iron»), «гепсидин» («hepcidin»), «ферропортин» («ferroportin»), «костный морфогенетический белок» («bone morphogenic protein»). Глубина поиска составила 14 лет (2011—2024 гг.).
РЕЗУЛЬТАТЫ
Механизм действия ERFE заключается в подавлении экспрессии гепсидина, что способствует повышению доступности железа для эритропоэза, особенно в условиях анемии и гипоксии. В дополнение к своему влиянию на метаболизм железа ERFE также является миокином и участвует в регуляции процессов регенерации мышечной ткани и обмена костной ткани. Исследования показывают, что ERFE обладает антиоксидантной активностью, это позволяет ему уменьшать выраженность воспалительных реакций, ассоциированных с нарушением обмена железа.
ЗАКЛЮЧЕНИЕ
Понимание молекулярных механизмов действия эритроферрона открывает перспективы для разработки новых подходов в лечении заболеваний, связанных с дефицитом или перегрузкой железом, а также с нарушением костно-мышечного статуса.
Ключевые слова
- эритроферрон
- железо
- гепсидин
- ферропортин
- миокин
- костный морфогенетический белок
Дата поступления: 07.06.2025
Дата принятия в печать: 05.08.2025
Дата публикации: 31.10.2025
Введение
Одним из важнейших микроэлементов, играющих ключевую роль в процессах метаболизма, роста и пролиферации клеток, является железо. Оно участвует в энергетическом обмене, транспорте кислорода, клеточном дыхании, синтезе ДНК, делении клеток, окислительно-восстановительных реакциях, образовании и освобождении нейротрансмиттеров, детоксикации ксенобиотиков, обеспечении неспецифической резистентности организма [1].
Исключительная роль железа определяется важными биологическими функциями белков, в состав которых оно входит: гемоглобина, миоглобина, участвующих в переносе кислорода и создании кислородного резерва в мышцах; цитохрома P450 и других ферментов, играющих важную роль в процессах биологического окисления, детоксикации ксенобиотиков и продуктов эндогенного распада. Кроме того, железо входит в состав пероксидаз, каталаз, цитохромов, нейтрализующих активные формы кислорода и поддерживающих окислительно-восстановительный баланс в организме [1, 2].
Цель исследования — описать роль эритроферрона в регуляции обмена железа, а также возможные молекулярные механизмы, лежащие в основе его действия.
Материалы и методы
Выполнен поиск отечественных и зарубежных публикаций по исследуемой теме в базах данных PubMed, РИНЦ и eLibrary с использованием следующих ключевых слов: «эритроферрон» («erithroferron»), «железо» («iron»), «гепсидин» («hepcidin»), «ферропортин» («ferroportin»), «к остный морфогенетический белок» («bone morphogenic protein»). Проведен анализ информации, представленной в обзорах литературы, оригинальных статьях, метаанализах. Глубина поиска составила 14 лет (2011—2024 гг.). Поиск данных литературы выполнен 21 апреля 2025 г. Кроме того, в обзоре представлены источники, имеющие даты публикации ранее 2011 г., если в них представлена ценная информация, касающаяся изучаемой темы.
Обмен железа в организме и его регуляция
В организме здорового человека содержится примерно от 3 до 5 г железа. При этом большая его часть, около 2100 мг, находится в составе клеток крови и костного мозга, где оно необходимо для синтеза гемоглобина. Эритроцит может содержать около 280 млн молекул гемоглобина, при этом количество железа составляет >1 млрд атомов на эритроцит [3]. Примерно 600 мг железа содержится в макрофагах различных типов. Около 1000 мг железа находятся в клетках печени, и лишь 400 мг — обнаруживаются в других клетках организма. Практически все метаболически активное железо связано с белками, и свободные ионы железа есть в организме лишь в крайне низких концентрациях. Это связано с тем, что свободное железо может быть токсичным и вызывать окислительный стресс [1].
В организме человека железо не синтезируется. Основными источниками поступления железа (25—30 мг ежедневно) являются: 1) гемовое железо, которое организм получает из разрушающихся эритроцитов, 2) железо, поступающее с пищей (1—2 мг/сут). Основные этапы обмена железа и белки, задействованные в регуляции этого процесса, обеспечивающие транспорт и хранение железа в организме, приведены на рис. 1 на цвет. вклейке.
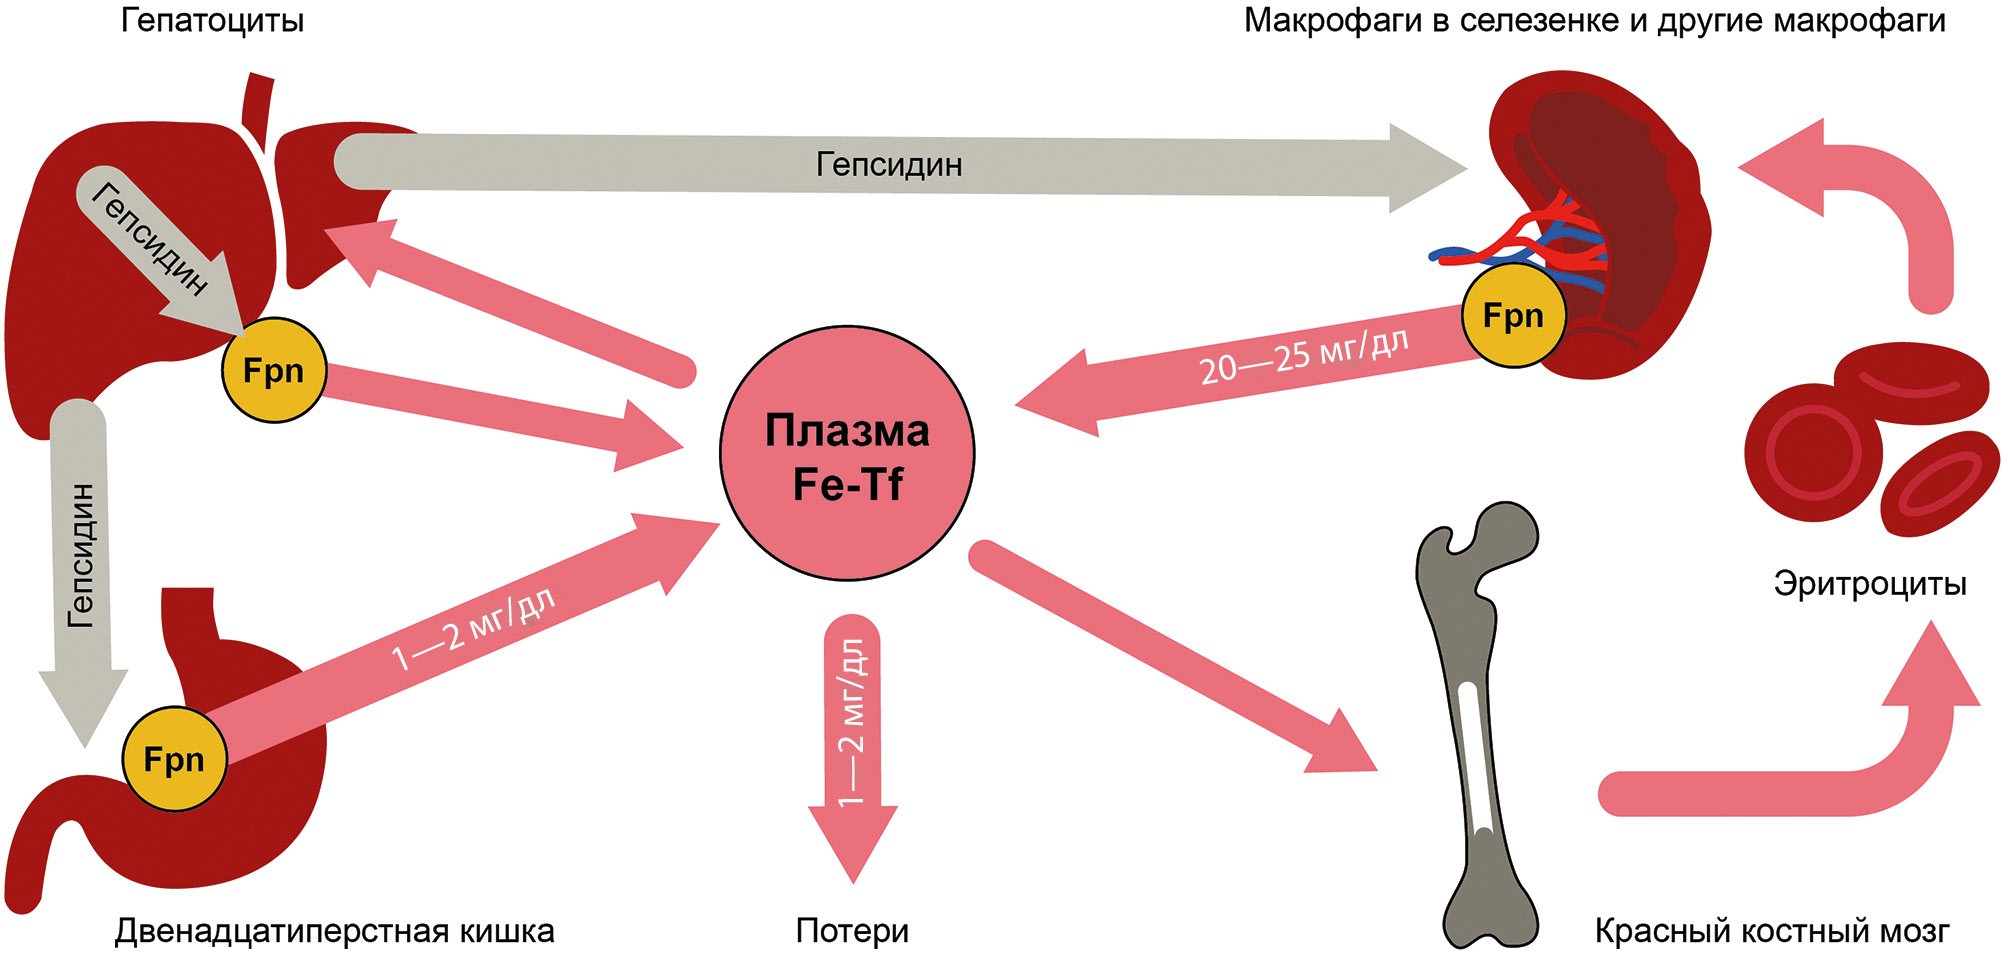
Рис. 1. Метаболизм железа в организме.
В поддержании гомеостаза железа в организме участвуют четыре основные ткани/органа: 1) желудочно-кишечный тракт, где происходит всасывание железа, поступающего с пищей, и его выведение из организма (примерно 1—2 мг/сут); 2) печень — ключевой орган, регулирующий накопление железа в организме посредством экспрессии гепсидина (обозначен серыми стрелками), который снижает концентрацию железа в плазме, вызывая эндоцитоз и протеолиз экспортера железа ферропортина (Fpn); 3) красный костный мозг, в котором железо используется для синтеза гемоглобина; 4) ретикулярно-эндотелиальная система, ответственная за хранение и переработку железа (ежедневно необходимо перерабатывать около 20—25 мг железа из эритроцитов). Железо, связанное с трансферрином, обозначено розовым цветом, а железо в эритроцитах — красным. Fe-Tf — комплекс железо—трансферрин; Fpn — ферропортин.
Всасывание железа происходит в двенадцатиперстной кишке и проксимальных отделах тощей кишки. Известно о трех путях транспорта железа через мембрану энтероцитов (для гемового, двухвалентного и трехвалентного железа соответственно). Каждый из этих путей обеспечивается отдельной системой: гем переносится белком HCP-1 (Heme carrier protein-1), двухвалентное железо — транспортером ионов двухвалентных металлов-1 (DMT-1, divalent metal transporter-1, также именуемый Nramp2, natural resistance-associated macrophage protein 2), трехвалентное железо — системой, которая включает муцины, интегрин и мобилферрин [4, 5].
Однако для эффективного всасывания негемовое железо (Fe³+) должно быть восстановлено до двухвалентного железа (Fe2+). Данный процесс осуществляется с помощью железоредуктазы, также известной как цитохром B (DcytB, дуоденальный цитохром B), которая локализуется на апикальной мембране энтероцитов. После восстановления двухвалентное железо проникает в клетки с помощью DMT1, который представляет собой основной регулятор всасывания железа в двенадцатиперстной кишке и верхней части подвздошной кишки. В последующем ионы железа либо поступают в системный кровоток, либо задерживаются в энтероцитах. Регуляция данного процесса осуществляется гепсидином. При избыточном содержании железа в организме микроэлемент задерживается в энтероцитах и в дальнейшем удаляется из организма вместе со слущивающимся эпителием. В случае дефицита железа оно поступает в кровоток и соединяется с трансферрином [4].
Гепсидин представляет собой полипептидный гормон, который синтезируется гепатоцитами и играет ключевую роль в регуляции уровня циркулирующего железа, ограничивая его выход из клеток в системный кровоток. Синтез гепсидина подвержен влиянию различных биологических и патологических факторов, из которых наиболее значимыми являются поступление железа с пищей, гипоксия, а также эндокринные, метаболические и воспалительные стимулы. Установлено, что уровень гепсидина повышается в том числе при субклиническом воспалении [6].
Основным механизмом, посредством которого гепсидин регулирует уровень циркулирующего железа, является связывание с трансмембранным белком-экспортером железа — ферропортином. Этот белок экспрессируется дуоденальными энтероцитами, макрофагами и гепатоцитами и играет важную роль в абсорбции, рециркуляции и депонировании железа. Во время беременности ферропортин также синтезируется в плаценте, обеспечивая транспорт железа к эмбриону [7, 8].
Продукция гепсидина изменяется в зависимости от состояния организма: она уменьшается при анемии и увеличивается при перегрузке железом. Поступление железа в организм приводит к повышению уровня гепсидина в крови, что в свою очередь снижает выработку ферропортина и препятствует выходу железа из энтероцитов в системный кровоток. Это способствует снижению концентрации железа в крови. Напротив, при дефиците железа уровень гепсидина уменьшается, что усиливает экспрессию ферропортина и, следовательно, увеличивает поступление железа в кровоток. Это сложное взаимодействие между гепсидином, ферропортином и другими компонентами системы регуляции обмена железа обеспечивает баланс между потреблением и хранением этого важного микроэлемента в организме [4, 9].
Следующий этап метаболизма железа заключается в его использовании после всасывания или реутилизации макрофагами. Как известно, после выхода из энтероцита или макрофага железо связывается с трансферрином и с его помощью транспортируется к различным органам и тканям.
Трансферрин представляет собой кислый гликопротеид и состоит из двух глобулярных доменов, каждый из которых может связывать один атом железа. Это позволяет трансферрину переносить до двух атомов железа одномоментно. Структура трансферрина также включает гликозилированные участки, которые могут влиять на стабильность белковой молекулы и ее взаимодействие с рецепторами на поверхности клеток. Концентрация трансферрина в крови зависит от уровня железа в организме: при его дефиците она увеличивается, а при избытке — снижается.
Передача железа из трансферрина в клетки происходит с помощью рецептора трансферрина (TrfR), трансмембранного белка, который связывается с трансферрином. Образовавшийся комплекс TrfR—трансферрин—железо погружается в эндоплазматическую везикулу — эндосому. Поступив внутрь клетки, железо может быть использовано для нужд клетки или откладываться в запас в связанном с молекулами ферритина и гемосидерина виде [10, 11].
Ферритин — внутриклеточный водорастворимый протеин, связывающий ионы трехвалентного железа (Fe³+). Молекулярная масса данного белка равна 440 000 Кд. Одна молекула ферритина связывает до 4500 атомов железа. Концентрация ферритина отражает тканевые запасы железа в печени, селезенке, мышцах, костном мозге, энтероцитах (15—200 мкг/л). Кроме того, он является белком «острой фазы». Ферритин выполняет две основные функции: во-первых, он служит резервуаром для железа, благодаря чему обеспечивается его вторая важнейшая функция — защита клеток от свободнорадикального окисления. Ферритин в основном находится в цитозоле клеток, но также обнаружен в ядерном матриксе, где, вероятно, обеспечивает ферменты и/или транскрипционные факторы железом, а также связывает свободное железо, предотвращая повреждение ДНК свободными радикалами. Кроме того, описан митохондриальный ферритин, который обеспечивает митохондрии железом, тем самым участвуя в биосинтезе гемсодержащих и железо-серных белков и защищая их от воздействия свободного железа [12].
Экспрессия ферритина регулируется белками семейства Iron regulator proteins (IRPs), которые могут увеличивать его синтез до 80 раз. Деградация ферритина происходит в лизосомах с образованием гемосидерина, образующего нерастворимый пул железа [13].
Эритропоэз и его взаимодействие с гомеостазом железа
Мозговой слой почек, интенсивно потребляющий энергию, отличается высокой чувствительностью к гипоксии. При несоответствии между потребностями почечной ткани в кислороде и его доставкой интерстициальные фибробласты инициируют синтез и секрецию эритропоэтина (ЭПО) с целью стимуляции эритропоэза в костном мозге. Регуляция данного процесса на транскрипционном уровне осуществляется с помощью фактора, индуцируемого гипоксией 2 (HIF-2). Клетки эритроидного ростка в костном мозге реагируют на сигнал ЭПО делением клеток и дифференцировкой в сторону зрелых эритроцитов [14].
В 2002 г. G. Nicolas и соавт. описали снижение уровня гепсидина у мышей с анемией, вызванной кровопотерей или гемолизом. В связи с этим сделаны предположения о прямом влиянии эритропоэтина на секрецию гепсидина [15]. Результаты более поздних исследований доказали отсутствие прямого влияния гипоксии и эритропоэтина на транскрипцию гепсидина [16—18]. Авторы предположили, что высокий уровень эритропоэтина снижает выработку гепсидина опосредованно, за счет индукции секреции эритроидных регуляторов в костном мозге. Эритроидные регуляторы в свою очередь подавляют экспрессию гепсидина гепатоцитами, что способствует активации всасывания железа, поступающего с пищей, в кишечнике, а также высвобождения железа из депо. В 2014 г. L. Kautz и соавт. в эксперименте на мышах изучали экспрессию мРНК белков, концентрация которых увеличивалась через 4 ч после кровопотери или инъекции эритропоэтина. Результатом исследования стало обнаружение секретируемого созревающими эритробластами белка Fam132b, члена суперсемейства фактора некроза опухоли α (ФНО-α). Группа исследователей назвала этот белок эритроферроном (синонимы: CTRP15 или мионектин) и доказала, что он функционирует в качестве биологически активного вещества, связывающего эритропоэз и метаболизм железа [17].
Эритроферрон (ERFE) принадлежит к семейству структурно связанных, секретируемых гормонов C1q/TNF-Related Protein (CTRP), обнаруживаемых у всех позвоночных. Доказано, что ERFE имеет 4-доменную структуру с уникальным N-концом и значительной гомологией последовательности с другими членами семейства в области C-конца. Полноразмерные человеческие белки состоят из 354 аминокислот и имеют прогнозируемую массу 37,3 кДа. Синтез ERFE происходит в селезенке и костном мозге и увеличивается при анемии хронических заболеваний, способствуя мобилизации запасов железа [18—20].
Механизм действия ERFE сложен и не до конца изучен. Полагают, что при достижении высоких цифр концентрации железа в крови и запасов железа в печени, под действием костного морфогенетического белка (bone morphogenetic protein, BMP, за счет связывания гетеродимера BMP2/6 с гетеротетрамерным рецептором BMP [20, 21]), через сигнальный путь Smad1/5/8 происходит активация синтеза гепсидина. Накоплено большое количество данных в пользу того, что ERFE существенно подавляет эту реакцию как in vivo, так и в клеточных линиях Hep3B in vitro [21]. Реализация этого механизма происходит следующим образом: молекулы ERFE, выделяемые эритробластами костного мозга, попадают в кровоток, достигают печени и проникают через фенестрации в эндотелиальных клетках синусоидов печени (LSEC) в пространство Диссе — перисинусоидальное пространство, которое отделяет гепатоциты от эндотелиальных клеток, выстилающих синусоиды. Эндотелиальные клетки синусоидов печени секретируют гетеродимеры BMP2/6, которые воздействуют на гепатоциты через рецепторы BMP. Однако ERFE связывается с гетеродимерами BMP2/6 до их взаимодействия с рецепторным комплексом BMP, что способствует гораздо менее выраженной активации сигнального пути Smad1/5/8 и, как следствие, транскрипция гепсидина увеличивается в меньшей степени. Описанный механизм подчеркивает важную роль ERFE в регуляции обмена железа и поддержании гомеостаза железа в организме [22] (рис. 2 на цвет. вклейке).
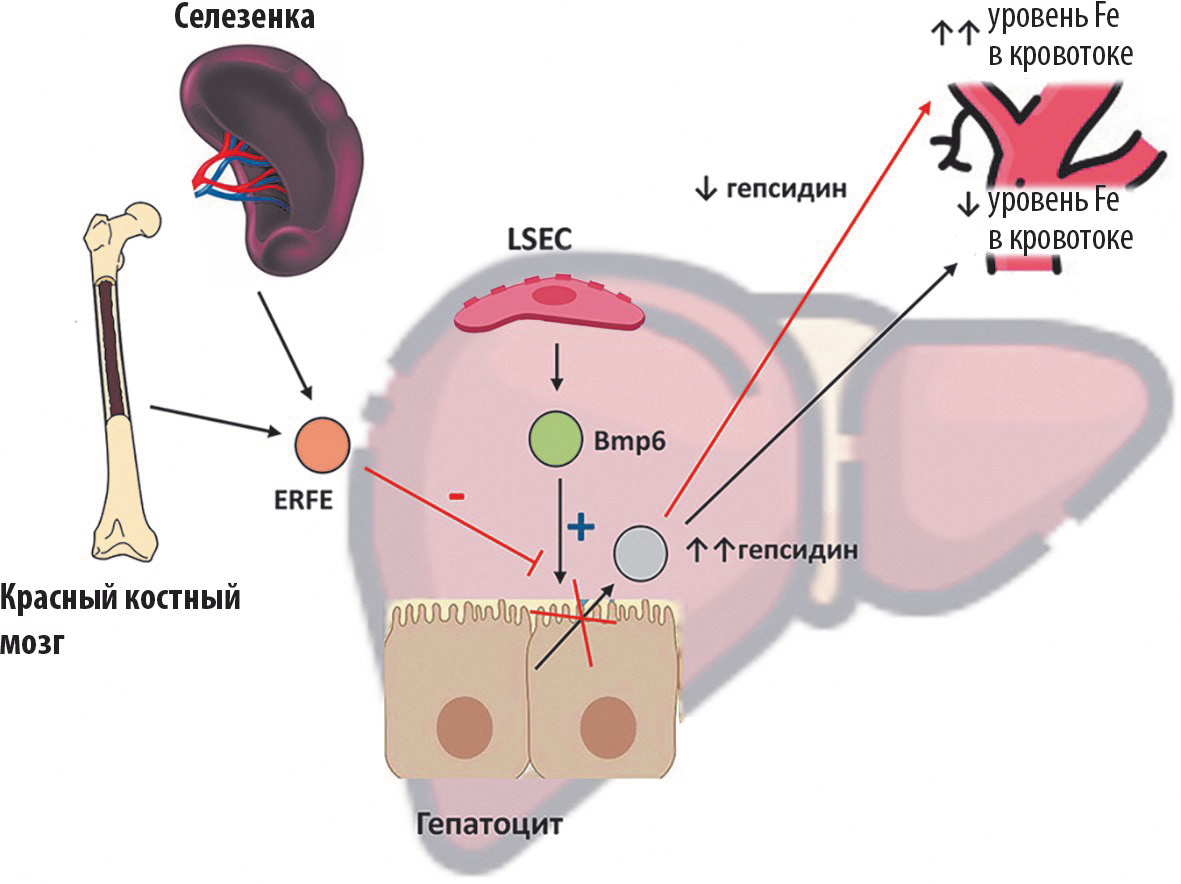
Рис. 2. Механизм влияния эритроферрона на обмен железа.
В условиях гипоксии, анемии, при интенсивной физической нагрузке происходит увеличение образования эритроферрона (ERFE) в селезенке и красном костном мозге. Эритроферрон препятствует взаимодействию гетеродимеров BMP2/6, которые синтезируются эндотелиальными клетками синусоидов печени (LSEC), с соответствующими рецепторами на гепатоцитах за счет их связывания. В результате не происходит повышения экспрессии гепсидина, уровень железа в кровотоке остается высоким. BMP2/6 — костный морфогенетический белок; ERFE — эритроферрон; Fe — железо; LSEC — эндотелиальные клетки синусоидов печени. Эффекты эритроферрона обозначены красным цветом.
Таким образом, в условиях анемии, гипоксии или при интенсивной физической нагрузке, когда требуется активация эритропоэза, уровень ERFE увеличивается. Это приводит к снижению уровня гепсидина и увеличению доступности железа, необходимого для синтеза гемоглобина и образования новых эритроцитов [20].
В 2017 г. разработан иммуноферментный сэндвич-тест на основе кроличьих моноклональных антител для обнаружения ERFE в образцах плазмы/сыворотки крови человека. Иммуноферментный анализ проведен с использованием образцов крови, взятых у трех групп добровольцев: здоровых взрослых мужчин, пациентов с анемией, получавших лечение эритропоэтином, и пациентов с β-талассемией (как не получавших препараты крови, так и постоянно их получавших). Установлено, что у здоровых добровольцев после проведения флеботомии наблюдалось повышение уровня ERFE и уменьшение уровня гепсидина в сыворотке крови. У пациентов, получавших лечение эритропоэтином, получены ожидаемые изменения концентраций ERFE и гепсидина. Концентрации ERFE у пациентов с β-талассемией, как и предполагалось, были повышены, при этом после переливания препаратов крови уровень ERFE снижался. Таким образом, полученные в исследовании результаты подтвердили ожидаемые (в связи с механизмом действия) изменения со стороны концентраций ERFE в каждой из исследуемых групп. Эти изменения были противоположны таковым в отношении уровня гепсидина в сыворотке крови [20].
Эритроферрон как миокин
Помимо своей ключевой роли в регуляции гомеостаза железа, ERFE способен проявлять функции миокина и влиять на метаболизм мышечной и костной ткани, печеночный гомеостаз и патогенез хронических заболеваний.
Влияние эритроферрона на метаболизм мышечной ткани
Установлено, что скелетные мышцы могут продуцировать миокин в ответ на метаболический стресс, физическую нагрузку и мышечное повреждение. В таких условиях ERFE участвует в процессах регенерации мышечной ткани, ускоряя восстановление структуры и функции мышц за счет воздействия на стволовые клетки: ERFE стимулирует их пролиферацию и дифференцировку [20].
Важной функцией ERFE в мышцах является предотвращение избыточного накопления железа, которое может приводить к окислительному стрессу и повреждению клеток. В то же время ERFE, выделяемый мышечными клетками, помогает при необходимости снизить уровень гепсидина, что в свою очередь увеличивает доступность железа для метаболических нужд. Это особенно важно, поскольку железо необходимо для синтеза миоглобина, митохондриального дыхания и процессов восстановления тканей. Кроме того, ERFE участвует в координации системного ответа на стресс, поскольку предотвращает развитие токсичных эффектов, обусловленных избытком железа. Таким образом, ERFE, выделяемый мышцами, действует локально как миокин, обеспечивая комплексную защиту и восстановление мышечной ткани [20, 23, 24].
Влияние эритроферрона на метаболизм костной ткани
Эритроферрон как миокин может участвовать в регуляции костного метаболизма, влияя на процессы ремоделирования костной ткани. В доступной для анализа литературе имеется ограниченное количество исследований, затрагивающих данную проблему. Установлено, что ERFE может активировать остеобласты, способствуя их пролиферации и дифференцировке, что ведет к увеличению синтеза костного матрикса. Это происходит за счет влияния данного миокина на сигнальные пути, связанные с дифференцировкой предшественников остеобластов. Так, например, он активирует пути, связанные с Wnt/β-катенином, играющие ключевую роль в дифференцировке остеобластов. Кроме того, ERFE может стимулировать секрецию факторов роста и цитокинов (остеоглобин и остеокальцин), которые способствуют минерализации костной ткани [25—27].
Эритроферрон участвует в регуляции активности остеокластов, приводя к уменьшению резорбции костной ткани. Это может быть связано с блокадой эффектов RANKL (лиганд рецептора-активатора ядерного фактора каппа-B), стимулирующего образование остеокластов. В частности, с угнетением процессов дифференцировки остеокластов из моноцитов или стволовых клеток костного мозга, а также посредством угнетения экспрессии генов тартрат-резистентной кислой фосфатазы (TRAP), катепсина K и ядерного фактора активированных T-клеток (NFATc1), экспрессия которых активируется под действием RANKL [28].
Показана способность ERFE воздействовать и на предшественников остеокластов, уменьшая их дифференцировку и активность, что также может приводить к увеличению костной массы [26, 27].
Влияние эритроферрона на механизмы воспаления, печеночный гомеостаз
Поскольку эритроферрон обладает свойствами миокина, его роль в патогенезе воспалительных реакций становится особенно значимой. Этот молекулярный посредник способен оказывать влияние на множество клеточных процессов, регулируя активность макрофагов и других иммунных клеток. Эритроферрон может влиять на дифференцировку и активацию макрофагов, способствуя их переходу в противовоспалительный фенотип (M2-тип), что приводит к снижению продукции провоспалительных цитокинов. Кроме того, ERFE может подавлять сигнальные пути, которые активируют макрофаги и другие иммунные клетки, тем самым уменьшая синтез и секрецию таких цитокинов, как ИЛ-6 и ФНО-α. Вероятно, это обусловлено ингибированием универсального фактора транскрипции (NF-κB) и других транскрипционных факторов, ответственных за воспалительные реакции. Кроме того, эритроферрон может способствовать увеличению количества регуляторных T-клеток, которые подавляют воспаление [29, 30].
Известно, что ERFE способен оказывать и антиоксидантное действие, что помогает уменьшить окислительный стресс в печени и, следовательно, снижать активацию воспалительных клеток [30, 31].
Значительное влияние на воспалительные процессы и печеночный гомеостаз ERFE оказывает посредством регуляции уровня железа в организме. Избыточное накопление железа, как известно, может стать катализатором воспалительных реакций, способствуя окислительному стрессу и активации иммунных клеток. Регулируя синтез гепсидина, ERFE способствует поддержанию оптимального уровня этого микроэлемента в организме. Таким образом, он не только предотвращает избыточное накопление железа, но и помогает снизить риск воспалительных реакций, которые могут возникнуть в результате его избытка [30, 31].
Эта взаимосвязь между регуляцией метаболизма железа и воспалением подчеркивает важность эритроферрона как потенциального модулятора иммунного ответа, открывая новые горизонты для понимания патогенеза хронических заболеваний и разработки терапевтических стратегий, направленных на коррекцию процессов обмена железа.
Заключение
В последние годы получено значительное количество данных, подтверждающих ключевую роль эритроферрона в регуляции гемостаза железа в организме, что позволяет рассматривать его и как полезный биологический маркер обмена железа, и как перспективную мишень терапии различных состояний, связанных с нарушениями обмена железа, например железодефицитной анемии или гемохроматоза. Кроме того, благодаря исследованиям последних лет стало известно, что эритроферрон также способен влиять на воспалительные процессы и иммунный ответ. Все это делает область изучения эритроферрона особенно перспективной и актуальной для обоснования клинических приложений.
Вклад авторов: концепция и дизайн исследования — Шептулина А.Ф., Драпкина О.М.; сбор и обработка материала — Елькина А.Ю.; написание текста — Елькина А.Ю., Шептулина А.Ф.; научное редактирование — Драпкина О.М.
Финансирование:исследование проведено в рамках научной работы «Ассоциация саркопении с метаболическими нарушениями, хроническим воспалением и изменениями психологического статуса у пациентов с ожирением», выполняемой в ФГБУ НМИЦ ТПМ Минздрава России в соответствии с государственным заданием Минздрава России №123020600129-8 (2023—2025 гг.).
Авторы заявляют об отсутствии конфликта интересов.
Authors contribution: study concept and design — Sheptulina A.F., Drapkina O.M.; data collection and analysis — Yelkina A.Yu.; writing of the manuscript — Yelkina A.Yu., Sheptulina A.F.; scientific editing — Drapkina O.M.
Financial Support:the study was carried out within the framework of the «Association of sarcopenia with metabolic disorders, chronic inflammation and changes in the psychological status in patients with obesity» scientific work performed in the National Medical Research Center for Therapy and Preventive Medicine in accordance with the state task of the Ministry of Health of the Russian Federation No. 123020600129-8 (2023—2025).
- Лукина Е.А., Деженкова А.В. Метаболизм железа в норме и при патологии. Клиническая онкогематолгия. 2015;8(4):355-336. https://doi.org/10.21320/2500-2139-2015-8-4-355-361
- Потемина Т.Е., Волкова С.А., Кузнецова С.В. Общие вопросы метаболизма железа и патогенеза железодефицитной анемии. Вестник медицинского института «Реавиз»: реабилитация, врач и здоровье. 2020; 3(45):125-137. Ссылка активна на 10.05.25. https://eduherald.ru/ru/article/view?id=20962
- Cassat JE, Skaar EP. Iron in Infection and Immunity. Cell Host and Microbe. 2013;13:509-519. https://doi.org/10.1016/j.chom.2013.04.010
- Camaschella C, Nai A, Silvestri L. Iron metabolism and iron disorders revisited in the hepcidin era. Haematologica. 2020;105(2):260-272. https://doi.org/10.3324/haematol.2019.232124
- Павлов А.Д., Морщакова Е.Ф., Румянцев А.Г. Эритропоэз, эритропоэтин, железо. М.: ГЭОТАР-Медиа; 2011.
- Будневский А.В., Есауленко И.Э., Овсянников Е.С. и др. Анемический синдром у больных внебольничной пневмонией. Клиническая медицина. 2016;94(1):56-60. https://doi.org/10.18821/0023-2149-2016-94-1-56-60
- Богданов А.Н., Щербак С.Г., Ломоносова Е.В. Обмен железа, железодефицитная анемия и кардиоренальный анемический синдром у больных пожилого и старческого возраста. Вестник Северо-Западного государственного медицинского университета им. И.И. Мечникова. 2017; 9(4):46-52. https://doi.org/10.17816/mechnikov20179446-52
- Kadam S, Khaitan M, Banerjee P. Ferroportin-inhibitor salt: patent evaluation WO2018192973. Expert Opinion on Therapeutic Patents. 2021;31(7): 585-595. https://doi.org/10.1080/13543776.2021.1928075
- Abboud S, Haile DJ. A novel mammalian iron-regulated protein involved in intracellular iron metabolism. Journal of Biological Chemistry. 2000;275(26): 19906-19912. https://doi.org/10.1074/jbc.M000713200
- Цветаева Н.В., Левина А.А., Мамукова Ю.И. Основы регуляции обмена железа. Клиническая онкогематология. Фундаментальные исследования и клиническая практика. 2010;3:278-283.
- Dev S, Babitt JL. Overview of iron metabolism in health and disease. Hemodialysis International. 2017;21:S6-20. https://doi.org/10.1111/hdi.12542
- Yanatori I, Nishina S, Kishi F, et al. Newly uncovered biochemical and functional aspects of ferritin. FASEB Journal. 2023;37(8):e23095. https://doi.org/10.1096/fj.202300918R
- Zhang N, Yu X, Xie J, et al. New Insights into the Role of Ferritin in Iron Homeostasis and Neurodegenerative Diseases. Molecular Neurobiology. 2021;58(6):2812-2823. https://doi.org/10.1007/s12035-020-02277-7
- Tsiftsoglou AS. Erythropoietin (EPO) as a Key Regulator of Erythropoiesis, Bone Remodeling and Endothelial Transdifferentiation of Multipotent Mesenchymal Stem Cells (MSCs): Implications in Regenerative Medicine. Cells. 2021;10(8):2140. https://doi.org/10.3390/cells10082140
- Nicolas G, Chauvet C, Viatte L, et al. The gene encoding the iron regulatory peptide hepcidinis regulated by anemia, hypoxia, and infl ammation. Journal of Clinical Investigation. 2002;110(7):1037-1044. https://doi.org/10.1172/jci0215686
- Liu Q, Davidoff O, Niss K, et al. Hypoxia-inducible factor regulates hepcidin via erythropoietin-induced erythropoiesis. Journal of Clinical Investigation. 2012;122(12):4635-4644. https://doi.org/10.1172/jci63924
- Kautz L, Jung G, Valore E, et al. Identification of erythroferrone as an erythroid regulator of iron metabolism. Nature Genetics. 2014;46:678-684. https://doi.org/10.1038/ng.2996
- Vallet N, Club du Globule Rouge et du Fer. The role of erythroferrone in iron metabolism: From experimental results to pathogenesis. La Revue de Medecine Interne. 2018;39(3):178-184. https://doi.org/10.1016/j.revmed.2017.05.008
- Zhang L, Xu P, Yan XY. Mechanism-based pharmacokinetic/pharmacodynamic modeling of erythroferrone in anemic rats with chronic kidney disease and chemotherapy-induced anemia: an early biomarker for hemoglobin response and rHuEPO hyporesponsiveness. ACS Pharmacology and Translational Science. 2025;8(1):189-202. https://doi.org/10.1021/acsptsci.4c00575
- Srole DN, Ganz T. Erythroferrone structure, function, and physiology: Iron homeostasis and beyond. Journal of Cellular Physiology. 2021;236(7): 4888-4901. https://doi.org/10.1002/jcp.30247
- Wang CY, Xu Y, Traeger L, et al. Erythroferrone lowers hepcidin by sequestering BMP2/6 heterodimer from binding to the BMP type I receptor ALK3. Blood. 2020;135(6):453-456. https://doi.org/10.1182/blood.2019002620
- Arezes J, Foy N, McHugh K, et al. Erythroferrone inhibits the induction of hepcidin by BMP6. Blood. 2018;132(14):1473-1477. https://doi.org/10.1182/blood-2018-06-857995
- Babar S, Saboor M. Erythroferrone in focus: emerging perspectives in iron metabolism and hematopathologies. Blood Science. 2024;16:6(4):e00198. https://doi.org/10.1097/BS9.0000000000000198
- Coffey R, Ganz T. Erythroferrone: An Erythroid Regulator of Hepcidin and Iron Metabolism. Hemasphere. 2018;2(2):e35. https://doi.org/10.1097/HS9.0000000000000035
- Машейко И.В. Биохимические маркеры в оценке процессов ремоделирования костной ткани при остеопении и остеопорозе. Журнал Гродненского государственного медицинского университета. 2017;15(2): 149-153.
- Черных Т.М., Волынкина А.П., Горшков И.П. и др. Нарушение метаболизма костной ткани у пациентов с нарушениями функции щитовидной железы. Остеопороз и остеопатии. 2016;19(2):59-60. https://doi.org/10.14341/osteo2016259-60
- Яглова Н.В., Яглов В.В. Эндокринные дисрапторы — новый этиологический фактор заболеваний костной ткани (обзор). Современные технологии в медицине. 2021;13(2):84-96. https://doi.org/10.17691/stm2021.13.2.10
- Kawaguchi M, Kawao N, Takafuji Y, et al. Myonectin inhibits the differentiation of osteoblasts and osteoclasts in mouse cells. Heliyon. 2020;6(5):e03967. https://doi.org/10.1016/j.heliyon.2020.e03967
- Патент РФ на изобретение №RU 2684216 C2/04.04.2019. Ганз Т., Немет Э., Каутц Л. Эритроферрон и Erfe-полипептиды и способы регуляции метаболизма железа. Ссылка активна на 10.05.25.
- Sakhin VT, Madzhanova ER, Kryukov EV, et al. Anemia of Chronic Disease: Key Mechanisms of Pathogenesis in Patients with Malignancies and Feasible Classification Approaches. Clinical Oncohematology. 2019;12(3): 344-349. (In Russ.). https://doi.org/10.17650/1818-8346-2018-13-1-45-53
- Хачатурян Р.А., Каравозова А.Е., Хидирова Л.Д. Патогенетические аспекты влияния глифлозинов на эритропоэз и обмен железа у больных хронической сердечной недостаточностью. Лечащий врач. 2024; 3:16-21. https://doi.org/10.51793/OS.2024.27.3.002


Рекомендуем статьи по данной теме:
Оценка уровня железа в мозговой ткани в контексте диагностики хронической алкогольной интоксикации.Судебно-медицинская экспертиза. 2026;69(2):22-27
Опыт применения препаратов двухвалентного железа у доноров крови.Профилактическая медицина. 2026;29(2):85-89
Оксидативный стресс и антиоксидантная терапия в лечении преждевременной недостаточности яичников и улучшении качества жизни.Проблемы репродукции. 2025;31(1):21-34
Оксидативный стресс, ферроптоз, соматические мутации, антиоксидантная терапия и эндометриоз: новый взгляд на проблему.Проблемы репродукции. 2024;30(6):32-44
Роль ферроптоза в репродукции. Современный взгляд на проблему.Проблемы репродукции. 2024;30(5):35-45